okt 13, 2026 | Artikler, Betalt samarbejde, GEDDE, Geddefiskeri med agnfisk, Nyheder, Predatorfiskeri, Video
Med Westins nye range “Deadbait” får du alt det grej, som du har brug for til dit fiskeri med agnfisk efter gedder.
I denne video viser Jens Bursell dig et bredt udpluk af stænger, hjul, grej og tilbehør fra den nye Deadbait-serie, samt demonstrerer, hvordan du i praksis bruger det til dit fiskeri med død agn efter gedder. Glæd dig en en super hyggelig tur med masser af deadbait-camphygge, tips til det praktiske fiskeri – og en stribe fine fisk taget på den nye deadbait range fra Westin.
Se videoen om fiskeri med deadbait efter gedder på Fisk & Fris YouTube her. Husk at abonnere på kanalen.
sep 30, 2026 | Artikler, Rejsefiskeri
En kold dag i februar startede en drøm om de varme lande og fisk man elles kun hører eller læser om – den mægtige mekong malle, alligator gar, arapaima, julians gold carp og ikke mindst siamese carp.
AF KIM VEJRUM CHRISTENSEN
Da jeg før har været i Thailand og fiske, har jeg efterhånden fået et god indblik i, hvordan det forgår der ude i østen, og hvor jeg ville hen. Mit valg faldt på en sø, hvor jeg har fisket før med stor succes sidste år. Jeg bookede derfor fem dage ved i Hookers Fishing Resort, som ligger ved Pattaya/Jomtien, der er små to timers kørsel fra lufthavnen i Bangkok. Mange jeg har talt med har med det samme spurgt, hvorfor har du ikke valgt Gillhams. Til det kan jeg kun sige, at jeg har fisket der, har også fanget fisk der, men jeg føler ikke jeg blev mødt på sammen måde som i Hookers, og i Gillhams måtte man faktisk ikke rigtig noget selv, hvilket ikke lige er mig med over 40 års erfaring.
I Hookers derimod, bestemmer man selv; skal guiden gøre det hele (ud over at fighte fisk) eller om man selv klare det hele. Jeg har så valgt en combo, hvor jeg lod guiden klare den stang der fisker med ”bolt” eller lamb, hvilket er en kæmpe foder kugle, der ofte vejre 1 kg eller mere. Så for at mine små danske pølsefingre ikke skulle blive helt flået i stykker, ja så blev det guidens job. Jeg klarede så selv en bollie stang med en PVA-pose, som jeg havde medbragt hjemmefra. Hvis man gør det, skal man lige huske på, at det skal være slow melt pga. Den sidste stang var med død eller levende agnfisk.
Endelig på fisketur til Thailand
Efter at have ventet i 149 dage på, at det skulle blive den 29 august, drog jeg endelig afsted mod Københavns Lufthavn og satte kurs mod Bangkok i Thailand – en lille tur på 11-12 timers flyvning. Hvad man dog ikke gør for at komme ud og fiske.
Vel ankommet til Bangkok og efter at have kommet meget hurtig gemmen lufthavnen, fandt jeg hurtig den bestilte taxi, som skulle bringe mig videre til Jomtien og det hotel, som jeg skulle overnatte på, så jeg kunne være frisk efter flyveturen og klar til de næste dages fiskeri. Jeg havde en stor forventning om, at fiskeriet nok skulle gå hen og teste mig,
og når man nu har en hel dag til at slappe af i, kunne man jo lige så godt starte med en gang massage efterfuldt af et par af de lokal øl hos nogle danske venner, der har en restaurant, og som jeg helt klart kan anbefale, hvis man komme på de kanter – nemlig Happy Vikings, som ligger på Jomtien Beach Road ved Soi 4. Kommer man her, er jeg sikker på Torben og Emil vil tag rigtig godt i mod jer.
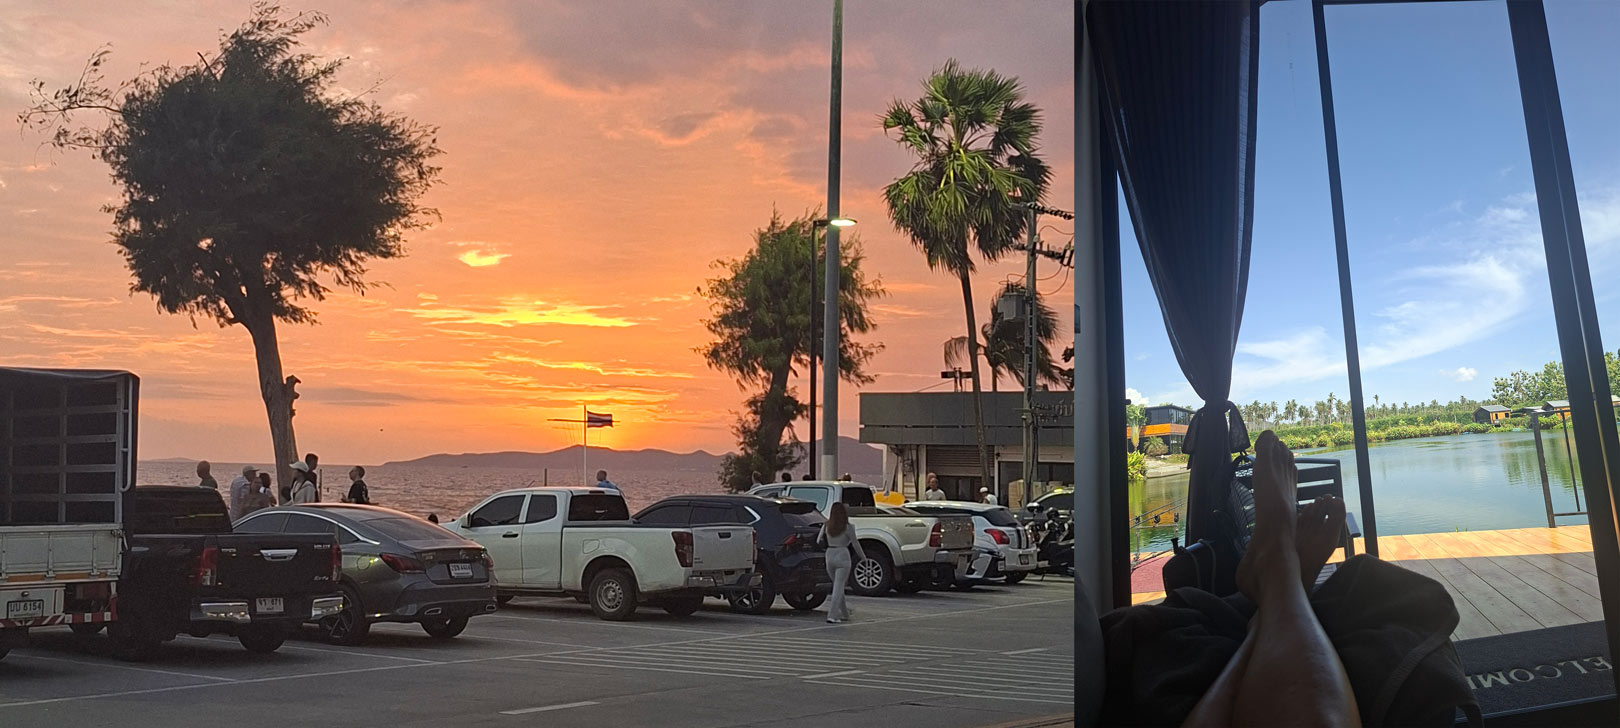
Udsigten fra Happy Vikings Jomtien Beach og panorama udsigt over søen.
Jeg ankom til søen ved 7-tiden om morgenen med min Greb, der er det samme som Uber og det er et must have når man rejser i Thailand. Og efter hotellet var jeg godt udhvilet efter en slapper dag med god mad og drikke.
Ved søen fik jeg sagt hej til de nye medarbejdere, og nogle stykker jeg kendte fra sidste gang, jeg var på besøg hos Hookers. Og så var det ellers bare med at kommer over til min hytte, det nærmest er en bivy på steroider med en dejlig seng, bord, stole, tv, wi-fi, air con, en lille pool – og selvfølgelig med panoramaudsigt ud over søen.
En fantastisk start med en siamesisk karpe på over 40 kilo
Fiskeriet starter klokken 8 og man fisker til klokken 19, som er efter mørkets frembrud, hvilket ikke er normalt i andre søer i Thailand. Fiskeriet foregår med to stænger, men man kan tilkøbe en ekstra, hvilket jeg altid gør. Med i prisen er et komplet set up med stænger, hjul, bidmelder, rodpod plus alle takler og det bait, man skal bruge, så man skal faktisk bare møde op ved søen. Man må dog gerne medbringe sit eget, som jeg også gjorde i from af Krill wafters, PVA-poser, stringer needles og andre småting, som man bare altid for brug for.
Med tre stænger i vandet var det bare med at vente, og jeg skulle ikke bruge læge, før jeg havde den første fisk, nemlig en siamese carp på ca. 40 kilo. Det blev startskuddet til en fanatisk første dag, der bød på vildt fiskeri med en masse tilbud og en masse fisk, der blev landet af de erfarne guider. Dagen igennen fik jeg landet 12 fisk som udenover 2 Siamese mere på 35 og 50 kg også inkluderede to julians golden carp på 16 kg og 19 kg. Dagens højdepunkt var dog en Chao Phraya malle på 65 , der også kaldes paroon shark på grund af dens hajagtige rygfinne.
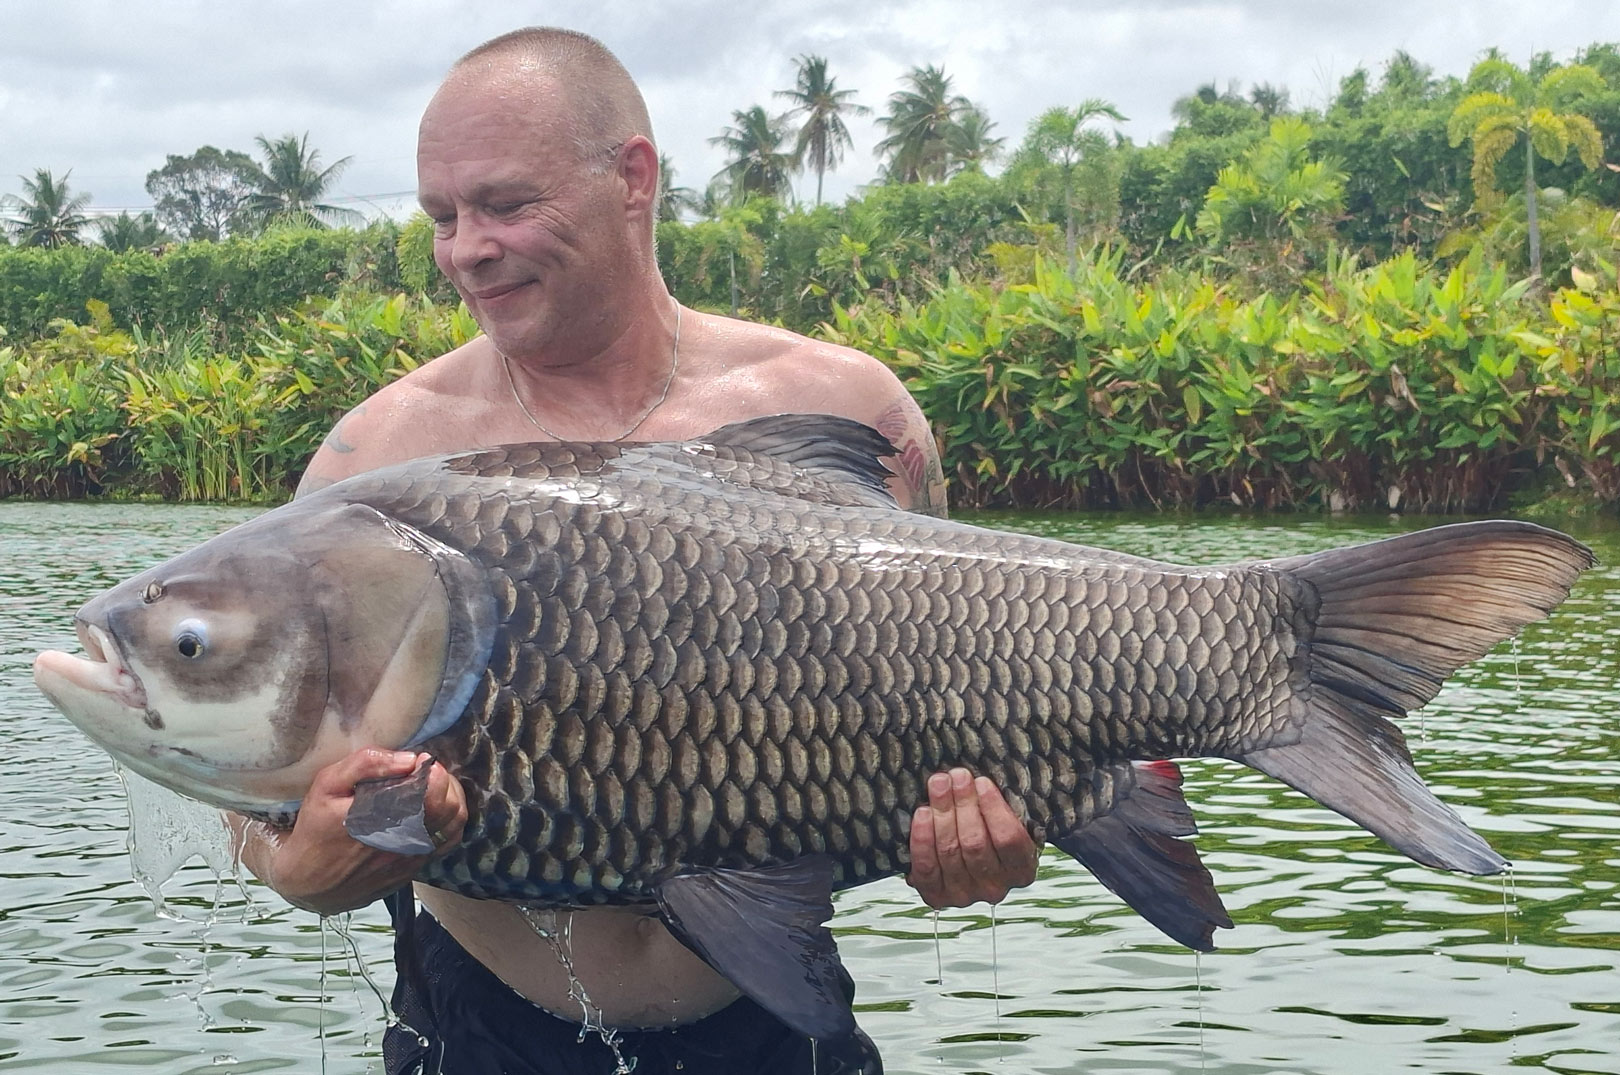
Kim Vejrum Christensen med en af sine fantastiske siamesiske karper – alias siamese carp.
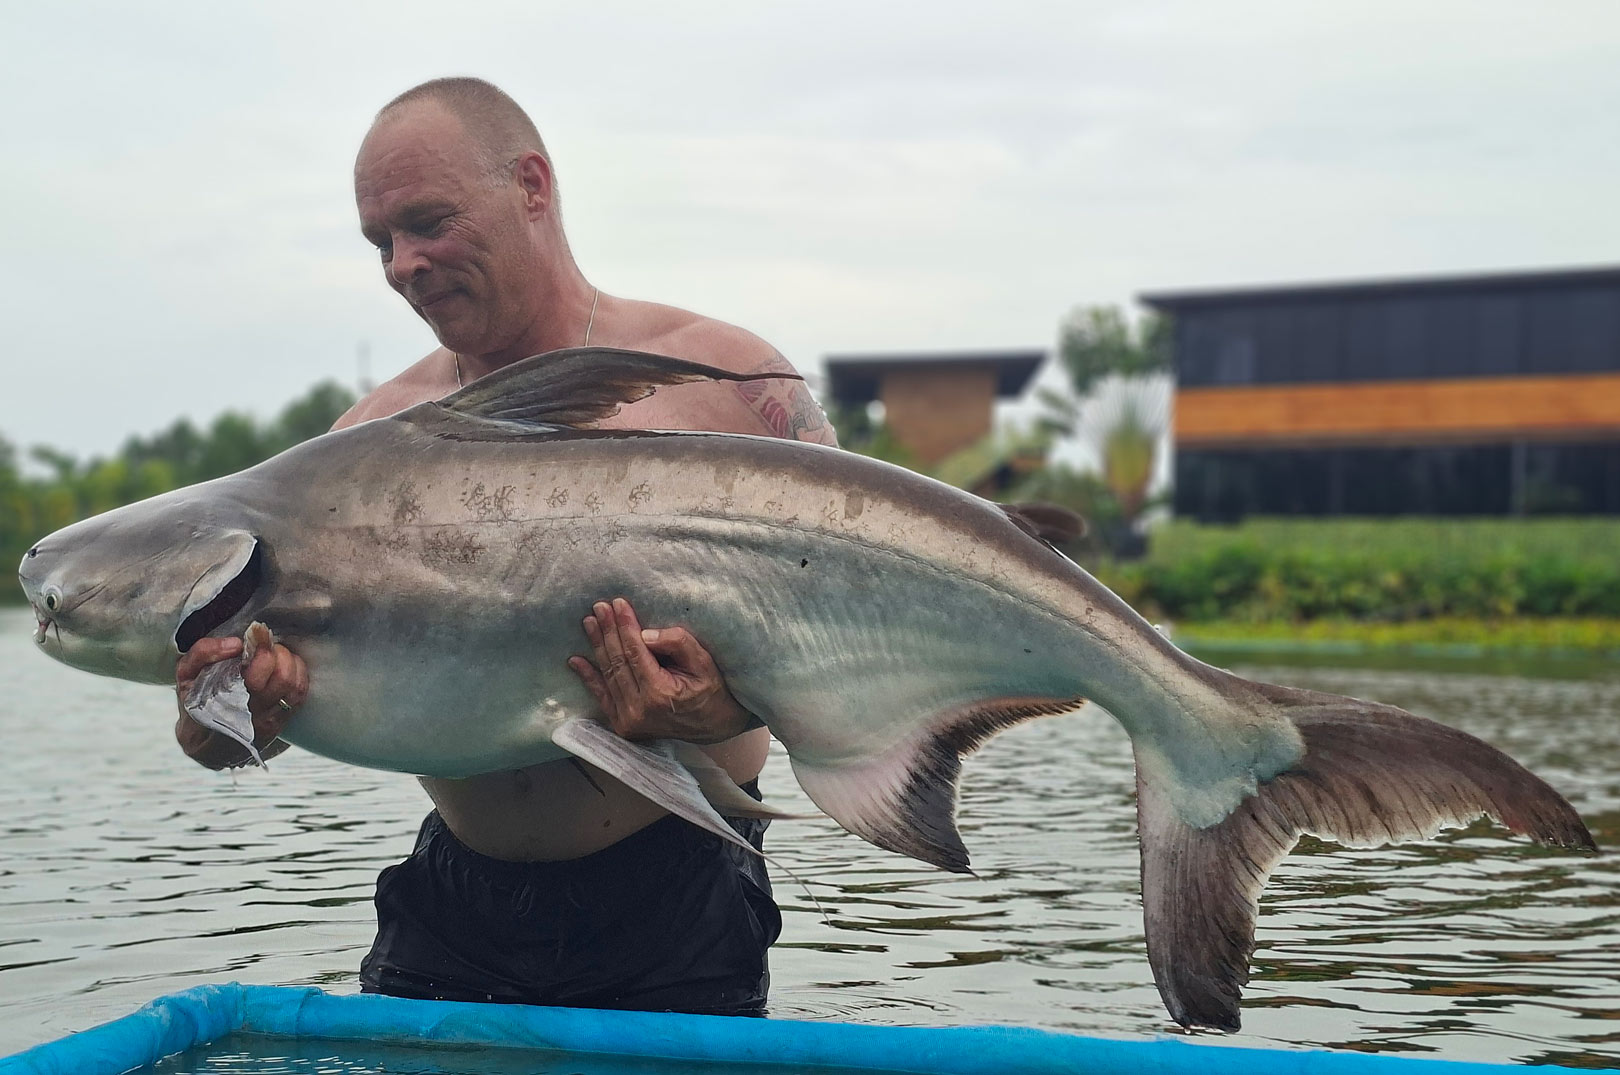
Kim med en gudesmuk chao phraya malle fra Hookers Fishing Resort.
Alligator gars og black carp på andendagen
Anden dagen startede som første dagen sluttede med fuld aktion fra starten af. Faktisk nåede jeg kun at få én stang i vandet, da en lille julians på omkring de 8 kg startede festen. Og fiskedagen skulle snart vise sig at blive en af dem, som man ikke lige glemmer – både på godt og ondt. På den gode side var to nye arter, som jeg ikke har haft heldet med at fange før. Den ene var en chinese black carp, en meget slimet fætter, som jeg ikke behøver at fange flere af, og den anden art var pansergedde – alias alligatorer gar – hvor jeg var så heldig at få tre på henholdsvis 16 kg, 25 kg og 28 kg.
Dagen bød også siamese carp op til 40 kg, julians op til 18 kg samt en flot pacu på 11 kg. På øv siden af dagen, må jeg se i øjnene at det også var dagen, hvor jeg mistede et hav af fisk – blandt andet en god arapaima, som er en af de fisk, jeg drømte om. Men – det værste var nok at smide en kæmpe mekong malle, der sikkert var på et stykke over 200 kg. Og for at det ikke skal være løgn, har jeg det også på video, da min GoPro filmede på livet løs, så den kommer jeg til at græde over mange gange.
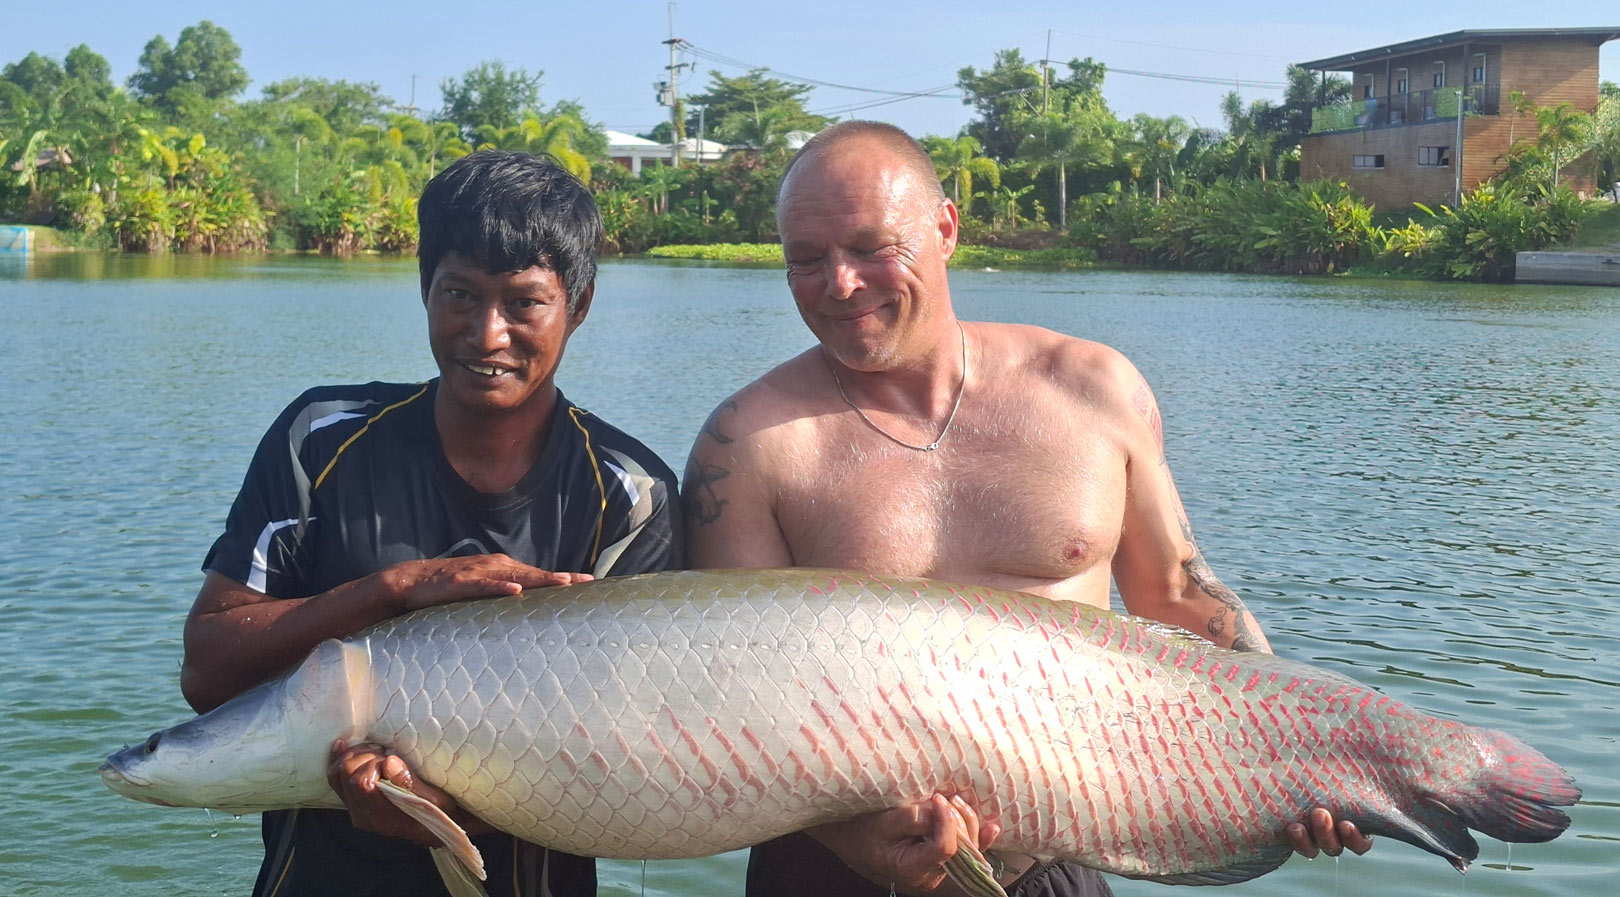
På turen gik Kims gamle drøm om at fange en arapaima endelig i opfyldelse.
Da arapaimadrømmen gik i opfyldelse
Fiskeriet begyndte at stilne lidt af og det hele var lidt mere normalt på de sidste dage. Der kom stadig fisk på land, men dog ikke i samme tempo, hvilket nok også var meget godt for min efterhånden godt prøvede krop. Jeg var heldig at få flere julians golden carp helt op til de 20 kg, hvilket jeg var superglad for, da jeg ser den som en af de smukkest karpearter, der findes.
På fjerdedagen var jeg dog heldig at få en af de fisk, jeg var taget til Thailand efter – nemlig Arapaima – en fiskeart, der oprindeligt stammer fra Amazonas. Det skal lige siges, at jeg på det tidspunkt havde smidt seks af dem, så troen på det skulle lykkedes var meget lille, men det lykkedes. Det var ikke en kæmpe, og slet ikke så stor som nogle af dem jeg har haft på, men jeg fik den, og vægten var 45 kg.
Det var slut på 5 fantastiske dage, som jeg nok ikke glemmer lige med det samme. Jeg havde dog lige en fiskedag mere i en anden sø, som jeg ikke har fisket før. Beretningen herfra kommer i del 2 af min thai fortælling. Hvis man nu har fået lyst til at prøve kræfter med fiskeriet i Thailand, og ikke helt ved hvordan man skal gribe det an, så skal man være mere end velkommen til at kontakte mig på instagram @kim_vejrum_fishing
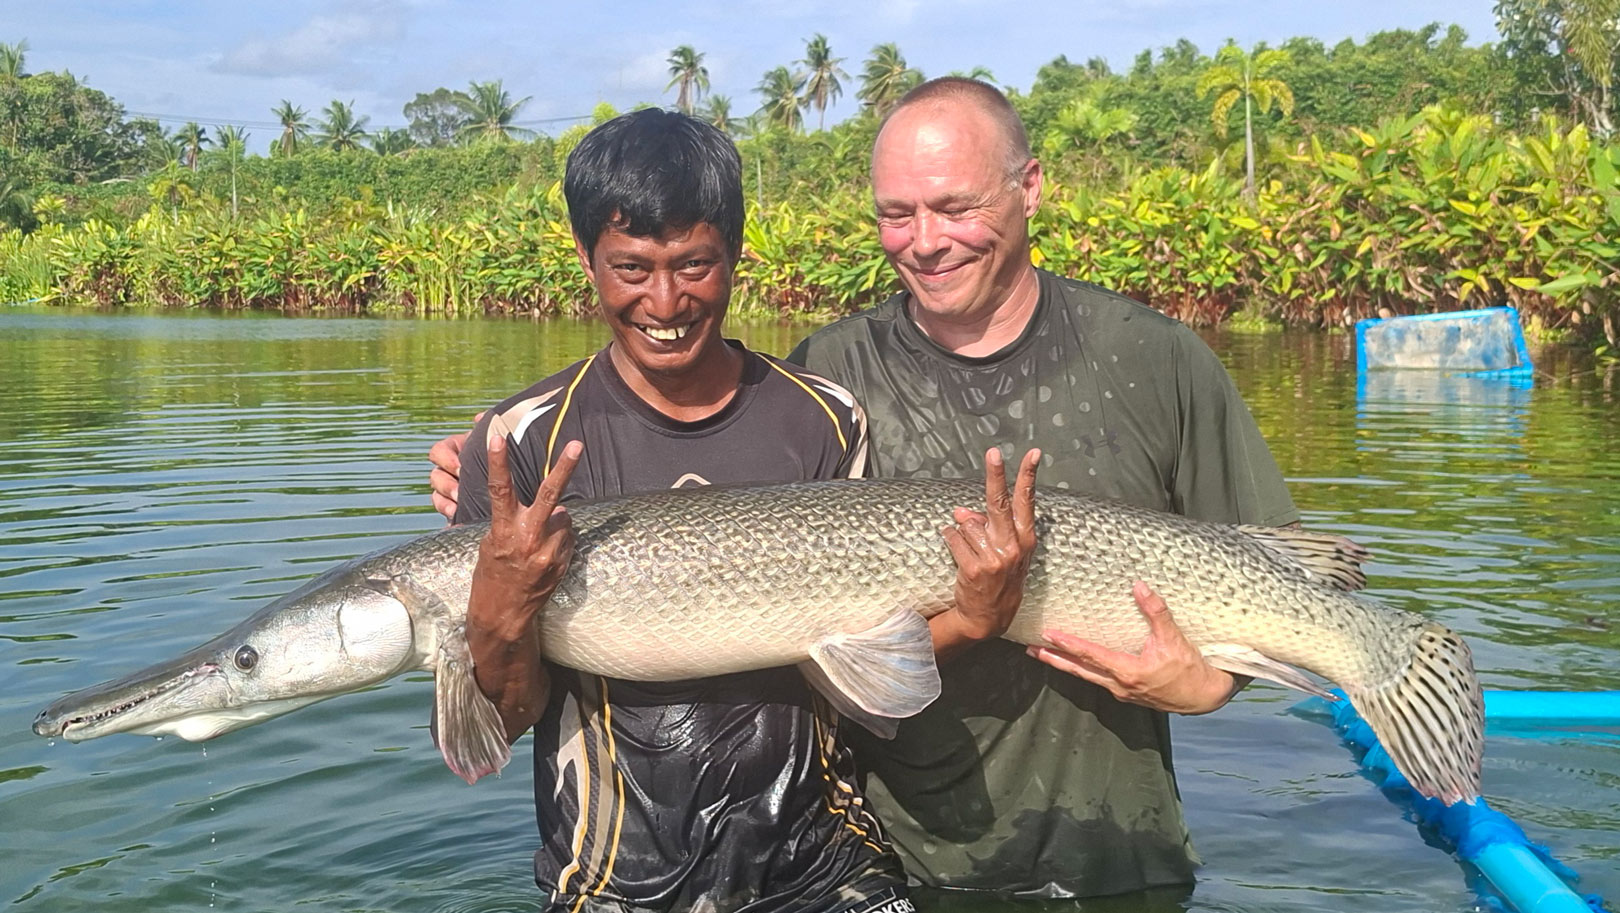
Det blev også til flere flotte pansergedder – eller alligator gars – som denne under fiskeriet hos Hookers Fishing Resort.
sep 26, 2026 | ABORRE, Artikler, Fluefiskeri
Popperfiskeri efter aborrer er blandt de mest hektiske former for hjemligt fluefiskeri overhovedet. Og med Epoxy Popper – en aborrepopper af dobbeltklæbende skumtape og epoxylim – har du et godt bud på en flue, som kan lokke aborrerne i dit lokale vand til overfladen.
AF RASMUS OVESEN
HØRER DU TIL DEM, der er vokset op med at fiske aborrer i den lokale mose, sø, å eller havn med alt fra små blanke spinnere, til hidsigt farvede jigs og sprælske orm fra haven? Er du samtidig én af dem, der – i takt med at spinnestængerne er blevet skiftet ud med fluestænger – er blevet mere og mere fedtfinnefanatisk. Og negligerer du som direkte følge heraf det ellers så fortryllende aborrefiskeri, som i første omgang var med til at vække og skærpe din interesse for fiskeri i det hele taget?
Mist ikke modet. For til alt held har du nu – mens det stadig er lidt varmt, og havørredfiskeriet kan tåle en pause – rig mulighed for at råde bod på den lange tids forsømmelse. Drag af sted til søen eller mosen, hvor stimer af frække sortstribede aborrer er på rov, for at få vakt en velkendt barnlig entusiasme og fiskeglæde til live igen.
Drilske sortstribede modstandere
Aborren kan, som du nok er bekendt med, være en særdeles humørsyg og drilsk modstander. Der er til gengæld også dage, hvor vandmasser nær bastante grødebælter og sivbræmmer. Så er de anderledes ivrige og aggressive end på noget andet tidspunkt af året. Når sommersolen flimrer og aborrerne er på finnerne langs rankegrøden, er der en bestemt slags aborrefiskeri ingen bør snyde sig selv for at prøve mindst én gang; popperfiskeriet. Det er et fiskeri, som kun den mest konservative fedtfinnegnavpot, kan fornægte – det er nemlig sindsoprivende spændende.
Aborrer på jagt i overfladen
Lokaliserer du først en god stime sommer-aborrer, der gerne bryder overfladen i deres endeløse jagt på byttedyr, så giver det hele for det meste sig selv. Aborrerne hugger i ét væk, og du får travlt med at kroge, fighte og lande den ene iltre fisk efter den anden. Omvendt kan der også være dage, hvor der skal mere finesse til, og på disse dage er indtrækningen og fluens bevægelsesmønster ofte af afgørende betydning. Aborren er en snu rovfisk, og ikke så sjældent skal de tirres til at hugge. Ellers følger de blot med eller napper prøvende i fluen.
Med popperfluer efter aborrer
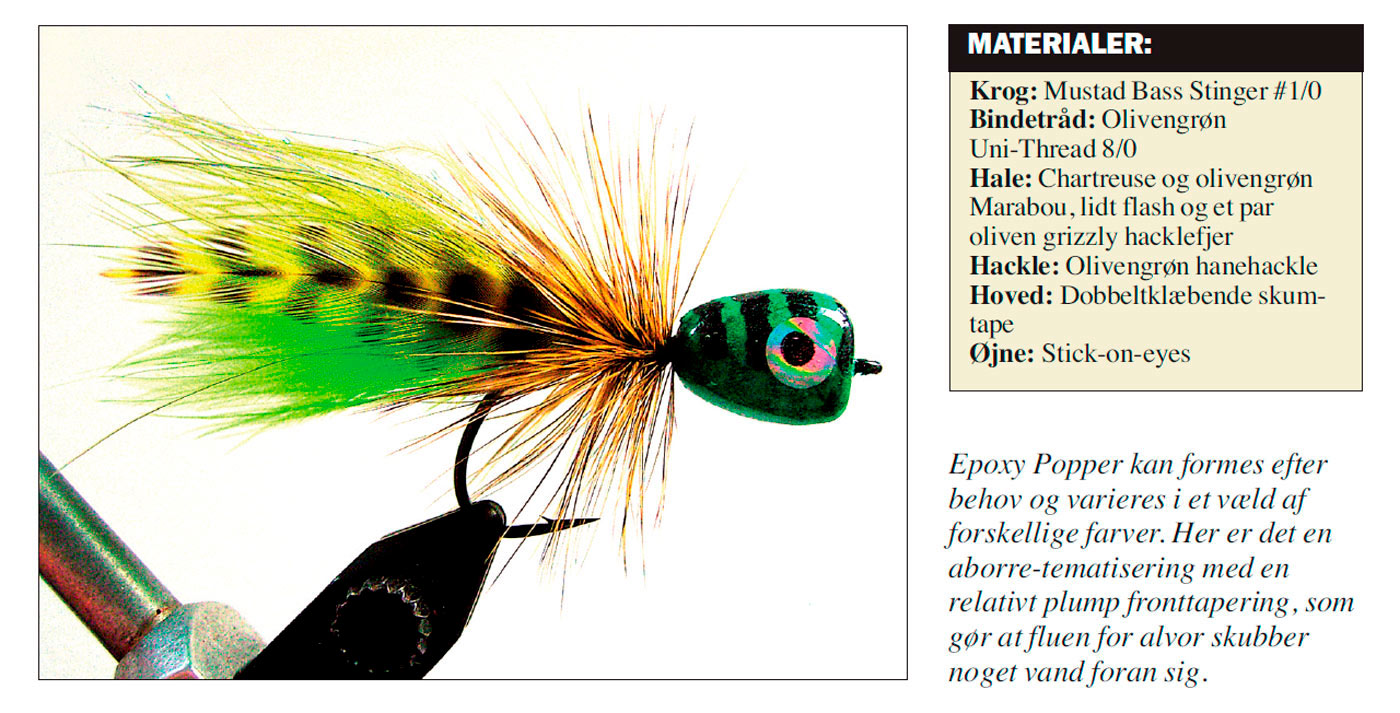
En flue, der virkelig kan sætte gang i overfladefiskeriet efter aborrer, er Epoxy Popper, som blandt andet brillerer ved, at den kan varieres i det uendelige. Selve popperhovedet er nemlig lavet af dobbeltklæbende skumtape, som kan klippes til i et væld af forskellige former. I forhold til de præfabrikerede, kommercielle popperhoveder har man altså her muligheden for at forme popperhovedet præcist sådan, så fluen opnår en personligt foretrukket gang i vandet.
Blandt andet kan man – blot for at nævne er par muligheder – tilklippe det, så fluen får en spids eller stump frontprofil, eller så fluen er kraftigt eller let dresset. På denne vis er man selv herre over, om fluen skal skvulpe, vrikke, dykke, svæve eller glide gennem vandet under indtrækningen. Særligt kan det være en fordel at forsyne fluen med et popperhoved, der er tilklippet så tilpas hårdhændet, at fluen blot hviler i eller svæver umiddelbart under overfladefilmen. I forhold til mere traditionelle poppere, der nærmest hopper forvildede henover vandspejlet, reducerer en sådan tilpasning mængden af fejlhug markant. Alt sammen uden at man misser fornøjelsen af de yderst visuelle angreb og eksplosionerne i overfladen.
Eksperimentér med tilklipningen af popperhovederne, og få lavet dig en samling Epoxy Poppere. Så har du et varieret arsenal af aborrefluer, som du kan eksperimentere med. Og så er du godt rustet til sommerens nervepirrende overfladefiskeri efter de hjemlige vandes sortstribede stimefisk – uanset hvilket humør de så end måtte være i.
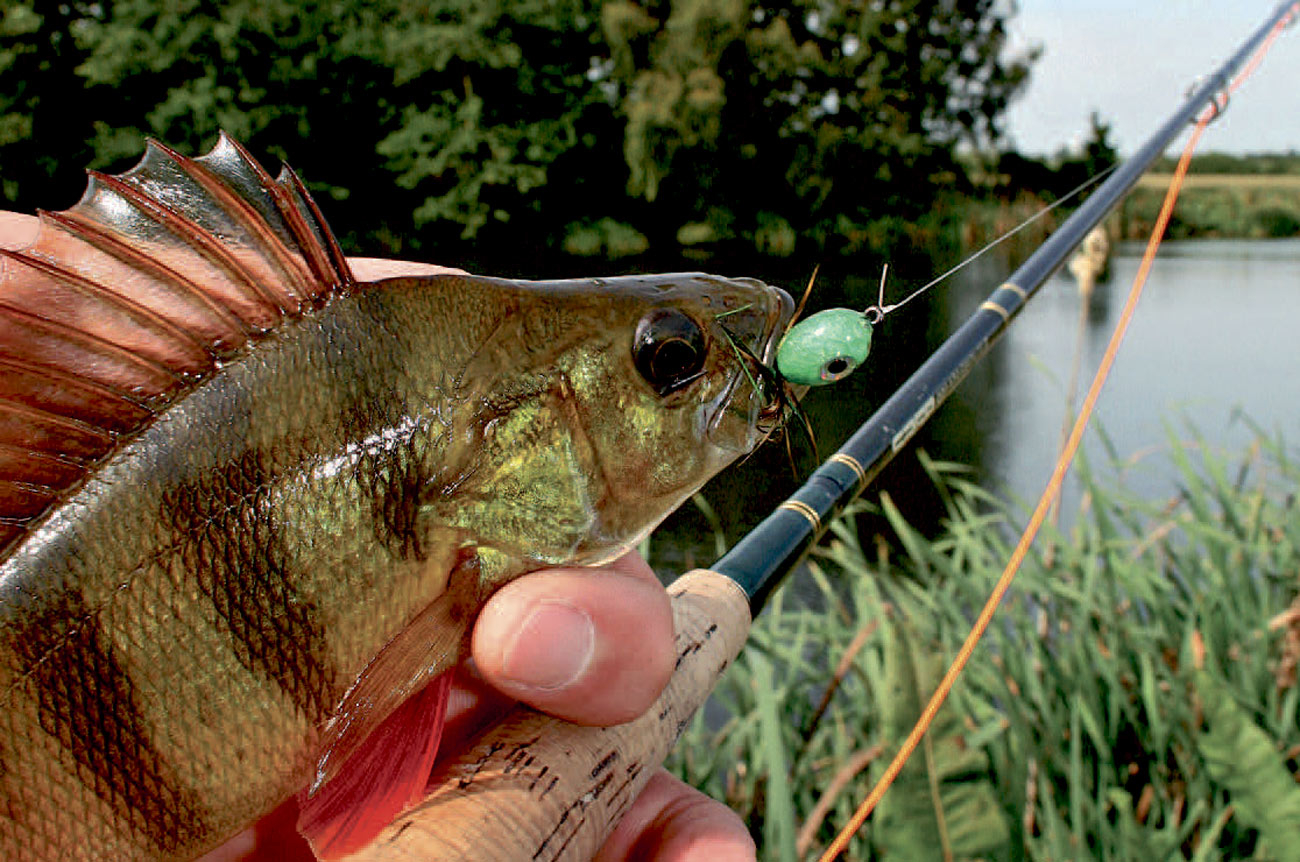
Det er bestemt ikke altid, at de helt store aborrer kan lokkes til overfladen. Til gengæld er de mindre fisk ofte helt og aldeles hæmningsløse.
Sådan binder du en epoxy popperflue til aborrer
1: Først færdiggøres popperhovedet, som fremstilles af dobbeltklæbende skumtape. Det vikles omkring krogwiren bag krogøjet og klippes af, når den ønskede størrelse og fylde er opnået. Herefter klippes hovedet til i facon med en skarp saks.
2: Nu skal popperhovedet males, og det kan med fordel gøres med en sprittusch. Bryd ikke hovedet unødigt med at overveje, hvilke farver aborrerne vil foretrække, men vælg de farver, som du synes, er mest appellerende. Aborrerne skal nok tage fluen, hvis den præsenteres og fiskes korrekt.
3: Når popperen har fået lidt farve i kinderne, sættes øjnene på, og så er det tid til at overtrække popperhovedet med epoxylim. Limen giver en jævn og glansfuld overflade og sikrer at skumplasten ikke bliver revet i stykker.
4: Når popperhovedet er tørt, bindes halen og hacklet ind, og herefter afsluttes fluen. Den er nu klar til sin første manisk poppende og særligt forførende retræte henover søens åbne vandspejl.
sep 22, 2026 | Artikler, Nyheder, Predatorfiskeri
USA byder på et hæsblæsende fiskeri efter store, stærke og skarptandede muskies. Følg med Fredrik Stjärnkvist til Minnesota på en gang hardcore spinnefiskeri, der vil kunne få pulsen op hos selv de mest hærdede jerkbaitfanatikere.
AF FREDERIK STJÄRNKVIST
JASON når akkurat at tage en enkelt omdrejning på hjulet, inden en stor muskie angriber hans gigantiske softbait Super Mag Bull Dawg. Med et kraftfuldt modhug driver han trekrogene ind i den behårde kæft, og et øjeblik efter basker den kraftfulde fisk vildt med hovedet i overfladen, så vi har perfekt udsyn til det imponerende tandsæt. Sekunder efter svømmer den direkte mod bunden, hvor han presser den vildt hårdt. Forundret over dens brutale råstyrke, står jeg lige bag ved og er klar med nettet.
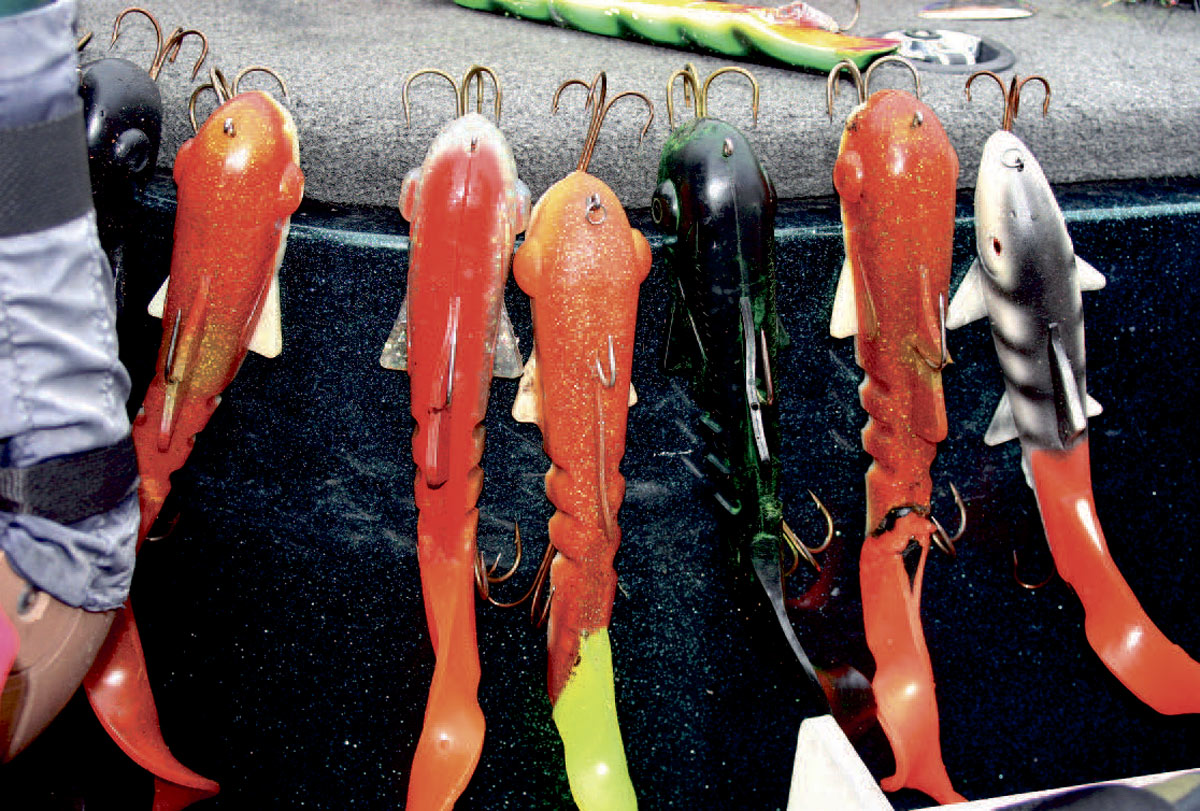
Store softbaits på 250-400 gram er topeffektive agn til både store og små muskies. Agnen pumpes ind ved at trække den en meter eller to med stangen, hvorefter man spoler line ind, mens stangen føres tilbage.
Efter muskie på Mille Lacs
Fisken er umulig at presse op, og et øjeblik er vi i tvivl om, hvorvidt den har sat sig i bunden. Jason øger presset, men det hjælper intet. Først da han spænder stangen til bristepunkt og håber på at line og krog holder, lykkes det ham endelig at få lidt line ind på hjulet. Men pludselig bevæger linen sig mod overfladen, hvor den enorme fisk blot 30 sekunder senere viser sin massive bredside i bølgerne. Med et jævnt og konstant pres lykkes det Jason at presse fisken helt ind til båden – og over kanten på det store net. Men så bryder helvede løs. I kaskader af vand pisker den muskuløse muskie vandet til skum, men til alt held ligger den sikkert i bunden af nettet… Et par minutter senere kan han stolt posere med en fantastisk stormuskie på 132 centimeter.
Det er blot førstedagen på vores muskie tur – og vi har allerede fået en af de eftertragtede 50 tommer fisk. Fantastisk! Dette er vores anden tur til USA efter muskies – »The fish of 10.000 casts«. Sidste år i september lykkedes det på trods af kulde og svært fiskeri at lande 13 fisk med den største på 51 tommer og 17-18 kilo. Fiskevandet var den gigantiske sø Mille Lacs umiddelbart nord for Minneapolis.
Denne gang er vi seks deltagere på årets muskieeventyr – tre fra Sverige og tre fra Finland. Og vandet – det er en ny sø i det vestlige Minnesota, hvor der ved testfiskeri er landet fisk helt op til imponerende 26,5 kilo. Jeg vil vove den påstand, at vi alle er dygtige sportsfiskere med stor erfaring i spinnefiskeri efter grove gedder. Men dette her er noget helt andet. Muskiefiskeri er ekstremt svært, og det er ikke noget, man lige lærer sig på et par dage. Når først muskien viser interesse for agnen og måske følger med ind til båden – så gælder det om at gøre al ting på den helt rigtige måde. Men det er ikke altid helt let, hvis man er oppe at køre, og adrenalinen pumper rundt i kroppen på en.
På tur med erfarne muskieguides
Derfor er det en stor fordel at fiske med erfarne muskie guides, og vi har været så heldige at få fat i tre af de aller dygtigste: Jason Hamernick, Brad Hoppe og Luke Ronnestrand. I 2007 satte Jason verdensrekord med intet mindre end 37 fisk over 50 tommer i sin båd. Og året før var det næsten det samme; 36 fisk over 50 tommer…
Stefan Trumstedt – alias Trumman – og Magnus Wallen fisker sammen med Luke i hans store rangerbåd. Allerede i tredie kasmister Magnus en 50 tommers muskie fem meter fra båden. Men til alt held får han sin første muskie på Figure 8 blot fem kast senere.
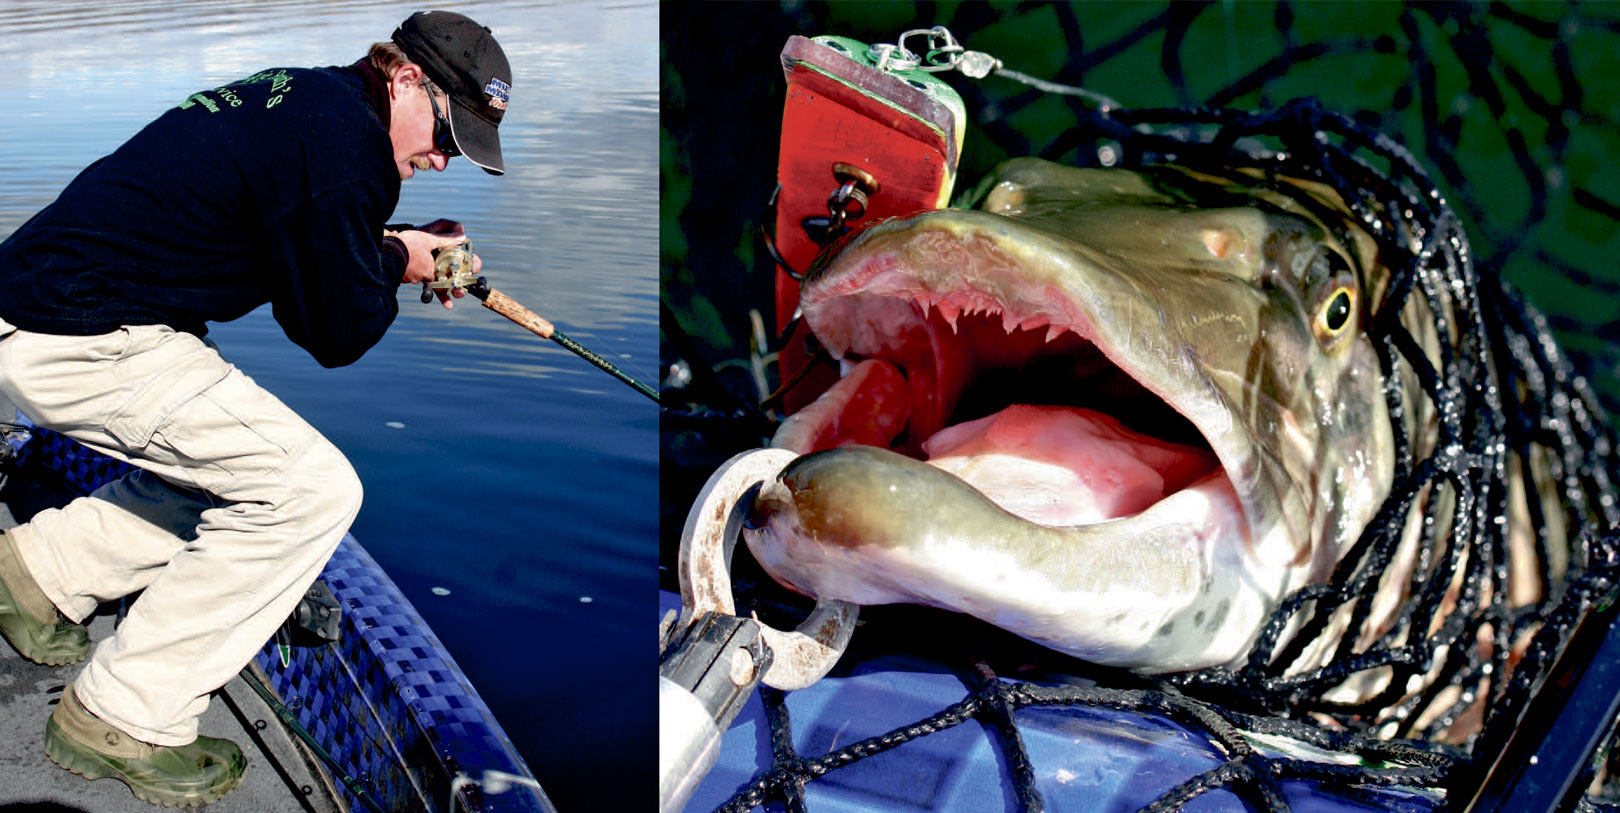
1) Muskiefiskeri kræver sin mand – og det rette grej. Både stang, hjul og line udsættes for massive bank – både under kast, indspinning og fight. 2) Det bedste og mest skånsomme er at afkroge fisken i nettet, mens den stadig er i vandet. Denne muskie er fanget på et pullbait – en type af agn, der skærer sig ned under indspinningen og stiger ved spinstop – præcis som en flydende wobler.
Udløs muskiehugget med figure 8
Figure 8 er en legendarisk muskie manøvre, der går ud på at tirre en følger til hug ved at køre agnen rundt i 8-taller helt inde ved bådsiden – indtil den til sidst bliver så arrig, at den kaster sig over agnen. Hugget virker ekstremt voldsomt på den korte line, men udrustning og krogfæste holder til den hårde belastning. Efter en solid gang vandplaskeri ved bådsiden kan han lande sin første muskie – en smuk 43 tommers fisk, der vejer i omegnen af de ti kilo. Det kan man roligt kalde en kanonstart!
Man tror altid, at man er klar til muskiens hårde hug og voldsomme energi, men virkeligheden er en helt anden. Følelsen af stangen, der nærmest bliver flået ud af hånden på én er simpelthen ubeskrivelig. En muskie hugger som en barracuda og kæmper som en bidsk rottweiler. Jeg har altid været kritisk og stillet spørgsmålstegn ved amerikanernes ekstremt kraftige udrustning. Behøver man fx virkelig 80-100 lbs liner, ekstremt stive stænger og kæmpestore trekroge? Svaret er ja. Efter at have oplevet muskiefiskeriet på nært hold, så forstår jeg hvorfor…
I modsætning til vores egne gedder, så er en muskie sjældent bange for båden. Ofte følger den med og bliver ved med at opholde sig i nærheden. Det er lige præcis derfor, at Figure 8 er så effektiv. Når tafsen næsten rører ved topøjet, stikker man stangspidsen ned i vandet og afslutter indspinningen med at køre agnen rundt i et 8-tal, som meget ofte er det, der udløser det brutale hug. Når man hører det første gang, trækker man måske lidt på smilebåndet, men når man ser hvor effektivt det er i praksis – så tvivlerman aldrigmere…
Stor agn til store muskies
Sådan lyder mottoet også i USA, når det gælder grove muskies. Det er midten af oktober, og vinteren nærmer sig med stormskridt. Nætterne er kolde og vejret om dagen veksler mellem sommervarme og bindende kolde efterårsvinde.
Det er nu, at muskien skal spise sig en pukkel til inden vinteren, og chancen for en rigtig grådig storfisk er maksimal. Om sommeren og i starten af efteråret er det især magnumspinnere med dobbeltblad, der fungerer bedst, men nu er det især store softbaits på 250-500 gram, som giver flest fisk i båden. Det er et fiskeri, der kræver slidstærke multihjul, stive 8-9 fods stænger og en veltrænet krop. Efter blot tre timers fiskeri værker alle mine muskler, og det bliver bare værre og værre og værre. Til sidst må jeg ty til smertestillende piller…
De første tre dage fisker jeg med Rami Eloranta och Jason – en international konstellation som fungerer rigtig godt mod alle odds. Ud over Jasons 52’er har vi ikke flere direkte kontakter den første dag – men i stedet omkring 10 følgere, der ikke rigtig kan beslutte sig for at tage agnen.
På andendagen slår Rami til med en 49 tommers muskie taget på figure 8. Da han på blot 30 centimeter line kroger den massive fisk, har jeg meget svært ved at tro på, at det nogensinde skal gå godt med at lande vilddyret, der pisker vandet i stumper og stykker med sin brutale kraft. Til at starte med er Rami lige ved at falde i vandet af bar foreskrækkelse, men efter lidt tid får han styr på situationen, så Jason kan lande den flotte fisk. Fisken vejer 14 kilo, hvilket er ny »finsk rekord« for muskie. Rami er slet ikke til at skyde igennem.
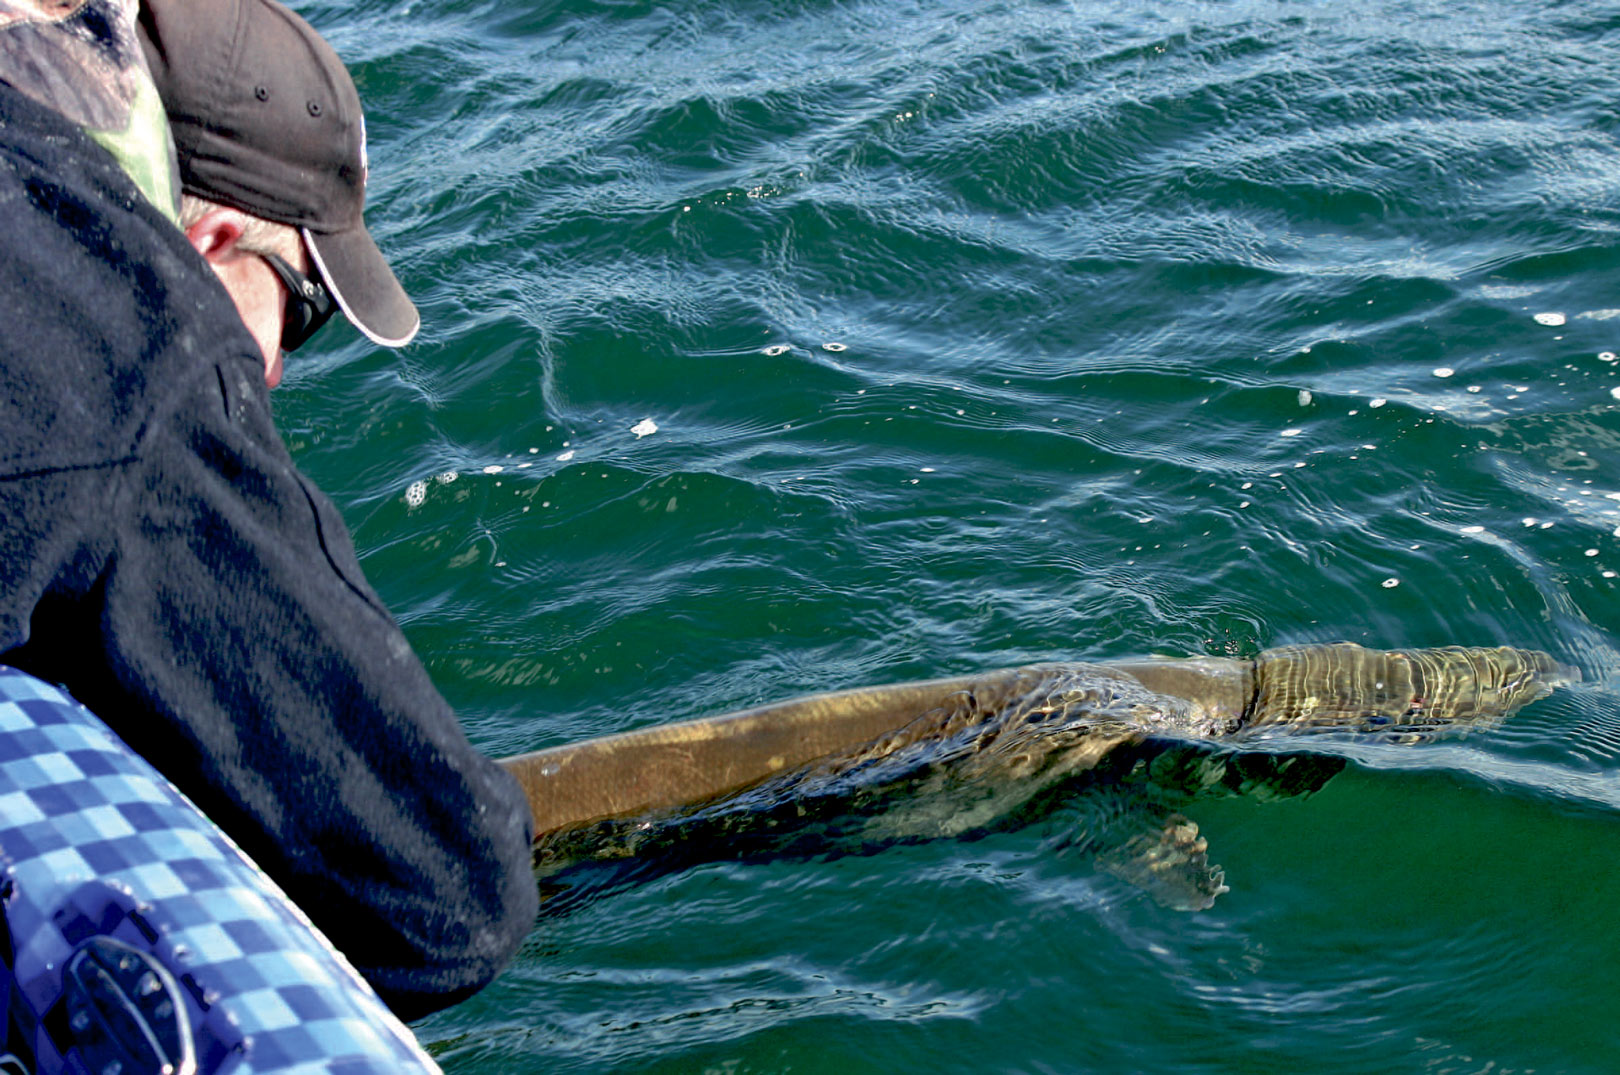
For at minimere skaderne på fisken, måler man kun længden i stedet for at veje fisken. Efter et par hurtige billeder genudsættes fisken forsigtigt.
Kampen for en store muskie
Den tredje båd med vores to finske kammerater, kommer hjem uden fisk også på andendagen, så her er humøret sunket en anelse. Matias mugger lidt. – First and last time muskie fishing, vrisser han, da vi i det tiltagende mørke trailer bådene. Jeg selv bliver ved med at kæmpe. Jeg har misset et hug og kan notere mig for den niende dag i min to år gamle muskie karriere uden fisk… Det her er ikke et fiskeri for utålmodige typer – det kræver hardcore ukuelighed og engagement.
Magnus Wallen får sine tredie muskie på 37 tommer og guiden Luke afslutter dagen med at lande en velproportioneret 50’er i skumringen På trediedagen er jeg toptændt. Nu vil jeg simpelthen fange en muskie – og det lykkes da også med en mindre fisk på 5-6 kilo – sandsynligvis søens mindste muskie. Men det er lige meget – jeg har fået min første muskie, og er overlykkelig. Endelig er forbandelsen brudt. Ud over min fisk fanger Magnus endnu en muskie og Brad får en hårdtkæmpende 49 tommer, som har gennemgnasket hans enorme softbait til ukendelighed.
Vi har nu fisket tre dage og fanget 17 fisk, hvoraf de to har været over de magiske 50 tommer. Nu er det kun tre mand, der venter på at fange deres første muskie.
Muskiefiskeri i hårdt og koldt vejr
Vejret har ændret sig radikalt. I stedet for varme vinde med solskin, så blæser det nu hårdt og koldt. Og det er noget, som kan lokke de store fisk frem. Ved hjælp af plotter og ekkolod manøvrerer Brad rutineret langs seksmeter kurven, hvor fiskene normalt holder til på denne årstid. Kan man oven i købet spotte vandplanter på loddet, så er det bare et spørgsmål om tid, inden man får kontakt. Muskien opholder sig pelagisk over vandplanterne i modsætning til gedderne, der typisk opholder sig i skjul af vegetationen.
I dag fisker jeg sammen med Matias og Brad, og vi fokuserer vores fiskeri i den vestlige del af søen. Om eftermiddagen får Matias et »slæk-hug« af den mest ekstreme slags. Fisken pisker ind imod båden, mens han spinner ind som en vanvittig for at forsøge at få stram line. Men først i det andet modhug får han kontakt og kroger fisken.
Stangen flekser totalt sammen, da fisken lægger vægt i, stiger til overfladen og rusker med sin solide kæft vidt åben i bølgerne. – Spin ind og hold kontakten, råber Brad, der gør klar med nettet. Efter en kort, men hård fight slutter netmaskerne sig om den flotte fisk. At en stiv muskiestang kan bukke så meget – det er simpelthen for vildt! Pragtfisken er 51 tommer og anslås til 16-17 kilo. En fantastisk fisk – og igen en ny »finsk rekord«. Mathias, som forbandede dette fiskeri for blot to dage siden, er nu i den syvende muskiehimmel, og er allerede godt i gang med at booke en tur til efteråret næste år. – Det her er det mest spændende, jeg nogensinde har prøvet, proklamerer han, og slutter dagen af med at bomme et hug fra endnu en storfisk. Grænsen mellem succes og fiasko er hårfin og afgrundsdyb.
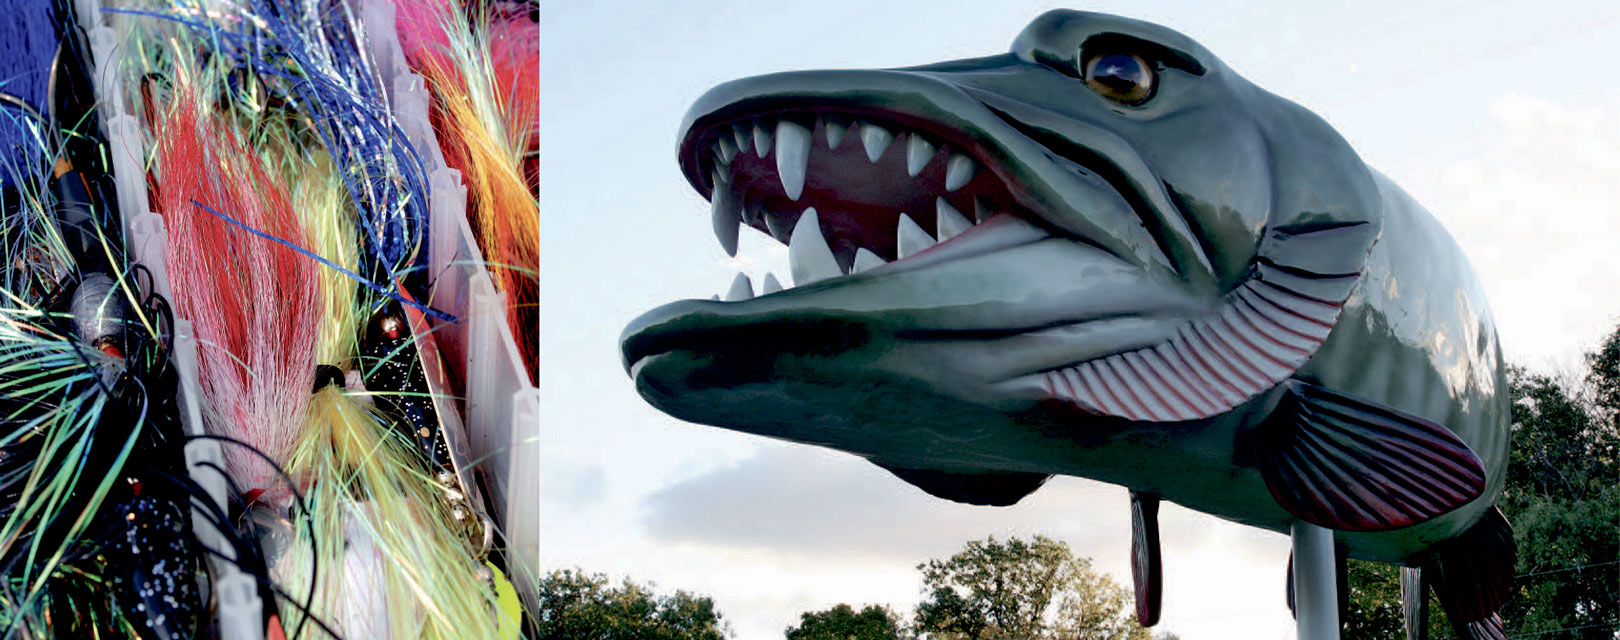
1) Store magnumspinnere med dobbelt blad er et af de allerbedste agn til store muskies. Agnen har især sin force, når vandet er varmt og uklart sommer – tidligt efterår. 2) Det er let at se, at muskien er tæt beslægtet med vores
skandinaviske gedde, men bliver noget større. Maksimalvægten ligger helt oppe omkring de 30 kilo. Denne her vejer dog noget mere…
Trumman får en stor muskie
På den sidste dag er det endelig Trummans tur til at føle muskiernes råstyrke på sin egen krop. På en hvid/chatreuse Mag Bull Dawg lykkes det ham at fange to flotte muskies på hhv 42 og 43 tommer, der begge kæmper som vanvittige, indtil de endelig lander i nettet.
Da vi fotograferer og genudsætter Stefans anden fisk, er der blot en time tilbage af årets muskietur. Dette er den trettende fiskedag i løbet af vores to ture – og først nu er det lykkedes ham at lande en muskie. Det siger lidt om fiskeriet, at så dygtig en jerkbaitekspert, kan være så lang tid om at få succes… I alt fangede vi 21 muskies på fem dages fiskeri, hvoraf tre var over 50 tommer. Da vi tager hjem mættet af indtryk, overtager et andet team med en dansk og to svenske geddefiskere. Og de rammer helt rigtigt med timingen. På 14 dages fiskeri lykkes det dem at fange ni muskies over 50 tommer, med den største på 52,5 tommer eller 133 centimeter.
Drømmefisken, der bliver fanget af svenske Tommy Edvardsson, bliver anslået til 22-23 kilo. Ja – du har gættet helt rigtigt – vi skal også afsted her til efteråret. Har man først fået muskiefeber, er der ingen anden kur end at fortsætte fiskeriet.
Artiklen blev oprindeligt publiceret i Fisk & Fri 6/2009
sep 20, 2026 | Artikler, Betalt samarbejde, GRÆSKARPE, Græskarpefiskeri, Medefiskeri, Nyheder
Jens Bursell har altid drømt om en stor græskarpe, men har aldrig rigtig fået gfjort noget ved det. Men – i sommers blev han enig med sig selv om at gøre noget ved det, og sammen med sin fiskekammerat Søren Beck tog han til Tyskland for at indfri den gamle drøm om en seriøs vegetarisk amurkarpe. Glæd dig til en fed medevideo med masser af lejrhygge og svedige karpefights fra gummibåden.
Se vidoen på Fisk & Fris Youtube kanal her. Husk at abonnere.
sep 18, 2026 | Artikler, Miljø og debat
Alt tyder på – som eftervist i del 2, at mellemskarven er en indført art i Europa, hvormed den – hvis dens status ændres på EU-plan – sandsynligvis også vil blive kategoriseret som invasiv. Altså som en art der skal bekæmpes – oplagt efter samme princip som fx mårhunden, der er spredt hertil på omtrent samme måde.
AF JENS BURSELL, FOTO: LARS LAURSEN & ADOBE STOCK
I del 1 og 2 har vi afdækket, at der ikke er dokumentation for, at mellemskarven er hjemmehørende i hverken Danmark eller Europa – samtidig med, at vi har eftervist, at best available science faktisk tyder på, at den er indført med menneskelig hjælp.
Mellemskarven er pt officielt beskyttet som en hjemmehørende art i Europa under EU’s Fugledirektiv – 2009/147/EC. En eventuel ændret status for mellemskarven på EU-plan vil naturligvis kræve mere research og en dyberegående peer-reviewed artikel, der afprøver den velunderbyggede teori om, at den er indført. Hertil kommer en længere politisk proces, inden man kan regne med, at der måske sker noget nyt. Hvis først mellemskarven får ny status som ikke-hjemmehørende, så vil den næste diskussion uden tvivl blive, hvorvidt den så skal kategoriseres som invasiv eller ej?
Meget tyder p.t. på, at mellemskarven er en ikke-hjemmehørende art i Europa, der er spredt hertil på samme måde som den invasive mårhund, der ses til højre ovenfor.
Hvornår er en art invasiv?
En art – eller underart – kan pr definition kun være invasiv, hvis den først er kategoriseret som indført eller ikke-hjemmehørende. Hernæst skal den yngle – hvilket mellemskarven i høj grad gør. Og – såfremt en indført art rent faktisk ikke påfører den oprindelige natur skade, kan man således sagtens have en indført art, som ikke er invasiv – fx karpen.
Når man skal vurdere om en art er invasiv, foregår det efter en nøje fastlagt procedure, hvor arten får en score 1-3 i kategorierne spredningspotentiale, levestedets bevarings- og naturværdi, påvirkning af hjemmehørende arter, påvirkning af økosystem funktioner samt økonomiske og helbredseffekter. 0 svarer til ingen, 1 svarer til lav, 2 svarer til middel og 3 svarer til høj påvirkning.
Potentielle og aktuelle negative miljø effekter vurderes med udgangspunkt i den belgiske HARMONIA-metode (også kaldet ISEIA guidelines) – og hertil vurderes negative effekter på sundhed og økonomi.
For at blive kategoriseret om invasiv skal arten normalt opnå en score på 14 eller derover.
Læs mere om invasive arter her.
Oprindelig, indført eller ikke-hjemmehørende?
Der er mange måder, hvorpå en art kan være indført ved menneskelig hjælp til et nyt område, hvortil den ikke ville have kunnet sprede sig naturligt. Det kan enten være en direkte menneskelig transport fra artens oprindelige udbredelsesområde fra A til B, eller det kan være en mellemting, hvor arten er transporteret af mennesker fra A til et nyt område B, hvortil den ikke selv kunne have spredt sig, hvorefter den selv har bredt sig det sidste stykke vej til C. Førstnævnte kan enten eller både være sket i ét eller mange trin samt i en eller mange omgange. Sidstnævnte kan enten være sket ved, at arten har udkonkurreret en eksisterende lignende art og overtaget – eller blot ved, at den har spredt sig ”naturligt” over større afstande og gradvist har etableret nye populationer i de nye områder.
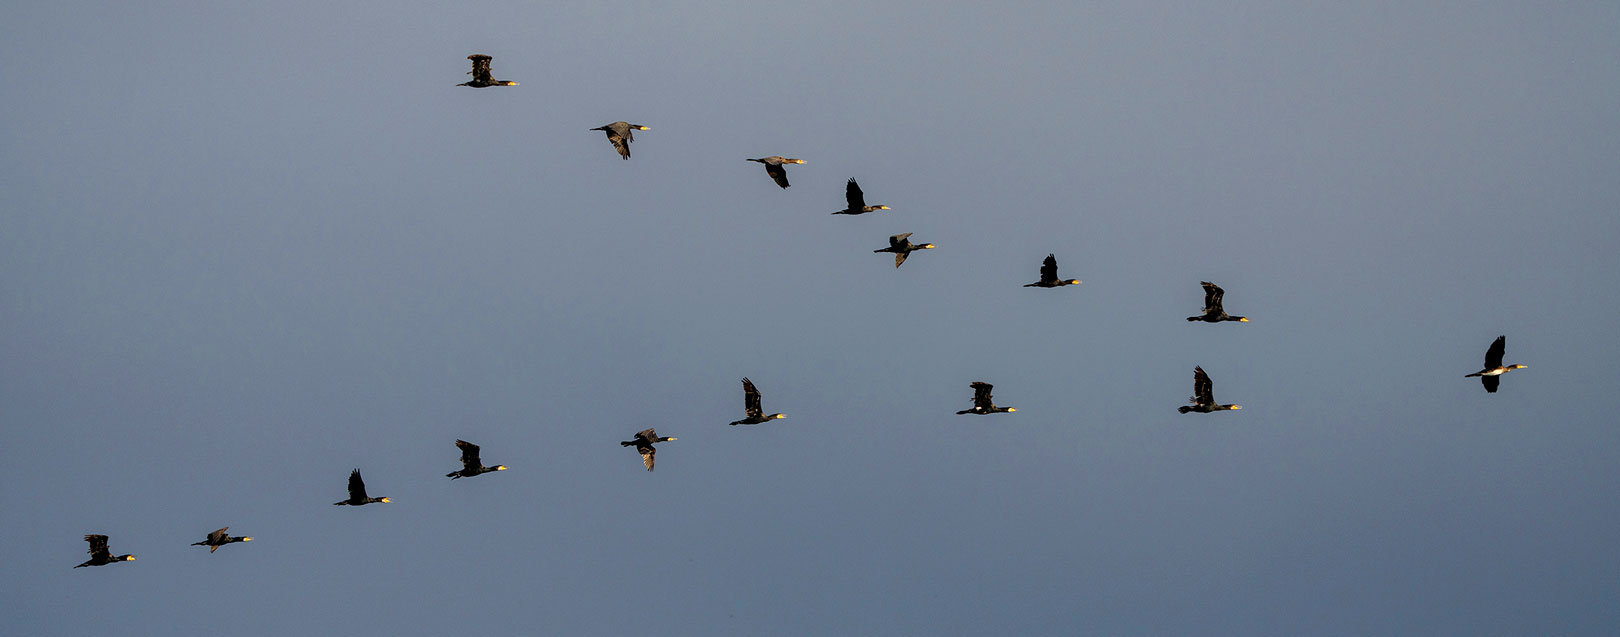
En stor del af de danske mellemskarver trækker sydpå om vinteren, men der er også en del, der bliver i landet. I trækperioden er der ydermere en masse skarv – især mellemskarv – fra de omkringliggende lande, der trækker igennem Danmark – og en del bliver her og overvintrer. Storskarven udgør en mindre del af de overvintrende skarv i Danmark.-
Mellemskarvens negative effekt på fiskene, fiskeriet og biodiversiteten
Der er omfattende dokumentation for den massive negative effekt skarven har på de europæiske fiskebestande, hvilket blandet andet er opsummeret i EIFAAC rapporten fra 2025: ”Framework for a European management plan for the great cormorant. European Inland Fisheries and Aquaculture Advisory Commission”. Tilsvarende er der solid dokumentation for de økonomiske tab skarverne påfører fiskeriet i Europa i EIFAAC rapporten FAO. 2026. ”European inventory of fish damages caused by cormorant predation”. Occasional paper No. 60.
Det siger næsten sig selv, at også biodiversiteten går ned i de områder, hvor skarven gør et massivt indhug i rødlistede, sårbare eller fåtallige bestande af fx snæbel, ål, laks, bæklampret, dyndsmerling, helt, flodlampret, hvidfinnet ferskvandsulk, stalling og stavsild og stør.
Mellemskarven kan også påvirke biodiversiteten af fugle, hvilket efter eftervist i af Verliin et al. i 2026. Her havde en forskergruppe analyseret fugledata for et 62 årigt datasæt på en række Estiske øer, og de fandt, at biodiversiteten – målt på det klassiske Shannon Biodiversitets Index – faldt signifikant ved etablering af mellemskarvkolonier.
Bliver det endeligt eftervist, at mellemskarven som indført fugl gradvist har fortrængt storskarven, så er dette også en klassisk invasiv effekt.
Som skitseret ovenfor, er det altså realistisk at antage, at hvis først mellemskarven bliver kategoriseret som ikke-hjemmehørende, så vil den sandsynligvis også blive erklæret invasiv.
Forvaltning af invasiv mårhund – præcedens for mellemskarv?
Men hvad så? Hvad er der af præcedens for, hvordan man forvalter en indført og invasiv art med en spredningshistorik, der minder om mellemskarvens? Et godt eksempel på en art, der forvaltningsmæssigt regnes som invasiv, er mårhunden. Den kommer oprindeligt fra Fjernøsten i et naturligt udbredelsesområde, som minder rigtig meget om den mest sandsynlige oprindelige udbredelse af mellemskarven for 2-5.000 år siden (del 2) – og oven i købet fra samme typer af habitater som mellemskarven.
Mårhunden blev over en periode fra 1928-1955 flyttet fra Fjernøsten og udsat i det vestlige Sovjet og østlige Ukraine med det formål at give bedre mulighed for jagt på pelsdyr, hvorefter den selv har spredt sig resten af vejen til Europa. Præcis som mellemskarven der – som beskrevet i del 2 – sandsynligvis er ført over den samme centralasiatiske spredningsbarriere af mennesker, hvorefter den selv kan have spredt sig videre vestpå mod og op gennem Europa.
Det betyder altså, at der er præcedens for at definere en art som invasiv, hvis den er flyttet af mennesker til et nyt område, hvortil den ikke ville kunne være kommet selv – hvorefter den selv har spredt sig videre via ”naturlig indvandring” over større afstande til de nye områder, hvor dens status som invasiv diskuteres. Mårhundens og mellemskarvens spredningsmønster er altså sandsynligvis påfaldende ens.
Erklæres mellemskarven som ikke-hjemmehørende i Europa, vil der altså allerede være præcedens for hvad der så skal ske – nemlig en målrettet bekæmpelse af arten. I Danmark er det på statens områder Naturstyrelsens ansvar at stå for bekæmpelsen.
Læs mere om forvaltning af den invasive mårhund her.
Evidensbaseret forvaltning af mellemskarven – her og nu?
Det bliver spændende at følge, hvad der kommer til at ske, nu hvor det med afsæt i eksisterende forskning er sandsynliggjort, at mellemskarven sikkert er en indført art i Europa.
For at få afklaret mellemskarvens fremtidige status i Europa hurtigst muligt, er det oplagt først at dokumentere skarvens spredningshistorik med en interdisciplinær tilgang som i del 2 – men som fagfællebedømt videnskabelig publikation. Dernæst bør evidensen for de efterviste spredningsteorier testes og perspektiveres med en større genetisk undersøgelse. Det skal optimalt set ske på både DNA fra subfossile skarv og nutidige skarvpopulationer i hele Eurasien og Afrika, så vi kan få et detaljeret billede af melleskarvens spredningshistorik, og komme frem til en endelig afklaring: Skal mellemskarven beholde sin status som hjemmehørende – eller skal den omdefineres til ikke-hjemmehørende og dermed sikkert også til en invasiv art?
En større genetisk undersøgelse, der giver et både sikkert og komplet billede af mellemskarvens historie, kan sikkert tage en hel del år. Indtil da kan der argumenteres for, at rettidig omhu – baseret på best available science – her og nu vil være at nedregulere bestandene af mellemskarv markant, men reversibelt. På denne måde kan man relativt hurtigt få nedsat det voldsomme prædationstryk, der lige nu er på de europæiske fiskebestande, samtidig med, at man altid kan lade populationen af europæiske mellemskarv brede sig igen, hvis det senere skulle vise sig, at den faktisk er en oprindelig europæisk art. Vi har siden firserne set, hvor hurtigt mellemskarven kan ekspandere, hvis den får lov til det. Så længe vi bibeholder en population af mellemskarv, der akkurat er stor nok til, at den med sikkerhed kan klare sig, vil der sandsynligvis være mere at vinde ved denne tilgang – end det modsatte.
Læs del 1 af artiklen “Er mellemskarven hjemmehørende i Denmark?
Læs del 1 af artiklen “Er mellemskarven hjemmehørende i Denmark – og Europa?
LITTERATUR:
Verliin et al: “Loss of avian biodiversity on Baltic islands after establishment of cormorant colonies” Proceedings B, Vol. 292, Issue 2071, 2026.
sep 11, 2026 | Artikler, Miljø og debat
Subfossil cormorant remains indicate that prehistoric populations in Europe and Asia were separated by a massive natural dispersal barrier in the Central Asian highlands, dividing the birds into two distinct populations. All evidence suggests that the westward spread of the continental great cormorant from Asia to Europe could only have occurred with human assistance, providing strong evidence that the European subspecies sinensis ssp. is not native to the Danish and European fauna.
BY JENS BURSELL, BIOLOGIST. PHOTOS: LARS LAURSEN & ADOBE STOCK
As established in part 1, there is neither subfossil nor genetic evidence demonstrating that the sinensis subspecies of the great cormorant was originally part of the Danish fauna. And since the relatively few bone finds in Denmark cannot reliably distinguish between the carbo and sinensis subspecies, the same naturally applies to the rest of Europe, where there is currently neither subfossil nor genetic evidence showing that sinensis was originally part of the native fauna.
Most previous studies of the history of European cormorants have taken a relatively narrow approach, without considering their history from a broader temporal and geographical perspective. To clarify the origin and arrival of sinensis in Europe, it therefore makes sense to look more closely at subfossil remains, zoogeographical zones and natural dispersal barriers across prehistoric Eurasia throughout the Holocene and Pleistocene. Combined with an interdisciplinary evolutionary perspective, this may provide a new, evidence-based interpretation of the dispersal history of the cormorant — Phalacrocorax carbo — and its two subspecies, the atlantic great Cormorant (carbo ssp.) and the continental great cormorant (sinensis ssp.).

The diffuse westward spread of the continental great cormorant from Asia to Europe—facilitated by humans, for instance via the Silk Road—is one of several possible explanations for how the previously geographically isolated Phalacrocorax carbo sinensis may have reached Europe, where it has since spread widely. (AI-GENERATED – Jesper Fohrmann)
The gradual human-assisted and “natural” westward spread of sinensis from Asia to Europe
My interpretation of what best explains the present-day global distribution of the two cormorant subspecies is that P. c. carbo is the original European subspecies, having been geographically separated from P. c. sinensis in East Asia by the vast Central Asian dispersal barrier. From there, a gradual and diffuse westward spread of sinensis, assisted by humans, may have taken place from East Asia across the Central Asian dispersal barrier and into Eastern and Southern Europe over a period perhaps spanning 500–1.000 years. This could have occurred along the extensive network of terrestrial and maritime trade routes associated with the Silk Road, potentially combined with more direct transportation or deliberate importation (Olburs 2008).
From there, it is plausible that both (a) further “natural” and (b) human-assisted dispersal of P. c. sinensis took place westward, northwestward and northeastward through Europe. In this scenario, (a) P. c. sinensis gradually outcompeted P. c. carbo, while (b) possible direct introductions from Asia and/or re-domestication of “wild-immigrating” cormorants of Asian origin may have further accelerated the northward spread of P. c. sinensis. The latter could readily have occurred after interest in cormorant fishing intensified in Venice from the beginning of the 16th century (Olburs 2008; Beike 2013, 2014), and was later reinforced by an interest in cormorant fishing in Renaissance France, the Netherlands and England (Olburs 2008; Beike 2013, 2014).
This new theory of a gradual introduction of Asian sinensis into Europe across a broad geographical and temporal front — combined with the subsequent “natural spread” of its Asian genes throughout Europe — does not conflict with the factual information and specific findings of previous studies. Rather, it helps support and explain a number of the questions left unanswered by earlier research and reviews of the literature.
Here is the background to my interpretation:
7,500 km between European and Asian great cormorants in the Pleistocene
The period preceding 11,700 years ago is known as the Pleistocene. During this period, great cormorant remains have been recorded in most European countries, including England, Ireland, Germany, the Czech Republic, Italy, Switzerland and Spain, as well as in Israel, Egypt and, furthest east, Azerbaijan. The two closest Pleistocene finds to Denmark were in Bavaria and Norfolk — both approximately 800 kilometres away (Tyrberg 1998).
Across Central and East Asia, there is only one location where great cormorant remains have been found from this period: Japan (Tyrberg 1998). What is striking here is the abundance of finds in Europe, the complete absence of finds across Western and Central Asia, and then the two finds in Japan.
Already at this point, it seems reasonable to consider the possibility that the western European/Middle Eastern subspecies may have been ancestral to the atlantic great cormorant (Phalacrocorax carbo carbo), while the eastern subspecies may have been ancestral to the continental great cormorant (Phalacrocorax carbo sinensis). The two may originally have been separated allopatrically by a natural dispersal barrier approximately 5,000–6,000 kilometres wide, stretching across the deserts and mountain ranges of Iran, the mountains of northern Pakistan, and the Hindu Kush, Karakoram, Pamir, Alai and Tien Shan ranges, with the Himalayas, the Tibetan Plateau, the Taklamakan and Gobi Deserts, and the Mongolian highlands further to the east.
In addition, large parts of the region extending from the eastern shores of the Caspian Sea to the western edge of the Central Asian highlands consisted of dry steppes and deserts, most of which would have provided unsuitable cormorant habitat. This would have further impeded any east–west dispersal of the two subspecies (see map below).
The absence of Pleistocene great cormorant remains from this belt stretching across Asia from Japan to Azerbaijan cannot be attributed to a lack of relevant archaeological excavations. In fact, 37 excavations involving analyses of subfossil bird bones have been carried out in Iran, Iraq, Kazakhstan, Kyrgyzstan, Uzbekistan, Mongolia, China and the Asian part of Russia (Tyrberg 1998) — without a single great cormorant being identified.

When cormorants migrate, they fly an average of approximately 60–100 kilometers a day before settling in a wetland area to rest and forage on freshly caught fish. Although the great cormorant is capable of flying several hundred kilometers in a single stretch, it is therefore unlikely that the eastern subspecies – Phalacrocorax carbo sinensis – spread naturally westward across the vast, arid, and high-altitude Central Asian barrier separating the two original ranges: Europe/the Middle East in the west and the geographically isolated population in the Far East.
European and Asian Cormorants in the Holocene — 11,700 Years Ago to the Present
The Holocene also provides numerous cormorant finds from Europe (Bregnballe and Gregersen 1995; Ericson and Carrasquilla 1997; Bullied and Grey 1911–17; Stewart 2002).
When searching for Asian subfossil cormorant remains from the Holocene, there are finds from southeastern Turkey, in the Upper Tigris region, dating to 11,700–10,500 BP (Zeder & Spitzer 2016), as well as finds from Saudi Arabia dating to approximately 5,000 BP (Monchot 2026), which could plausibly belong to the western great cormorant. Northeast of this area lie the Persian Gulf and the deserts of Iran and Afghanistan, forming a massive dispersal barrier extending northeastward toward the Central Asian plateau.
There are also great cormorant subfossils dating to 9,020–8,650 BP from Lake Baikal in Siberia (Nomokonova et al. 2015). However, because this site lies north of the species’ present-day northernmost distribution — probably as a result of the Holocene Thermal Maximum, which occurred approximately 10,300–7,900 BP — this find is less relevant to the question of possible human-assisted westward dispersal of the continental cormorant. It predates by a considerable margin the period when cormorants were domesticated, as discussed below.
The coldest period on the northern Central Asian plateau occurred between approximately 4.000 and 200 BP (Bliedtner 2022). This would presumably have made natural westward dispersal by Chinese continental great cormorants or fishing cormorants particularly difficult during the several thousand years in which cormorant domestication may have emerged and subsequently developed — coinciding almost exactly with the period when trade along the Silk Road reached its peak.
There are also subfossil great cormorant remains from Asia dating to approximately 4.000 BP that have been verified through ancient DNA (aDNA) analysis from the Tibetan Plateau, 300 kilometres west of Lhasa (Wang et al. 2025). These could plausibly represent the eastern continental cormorant population. The Lhasa River eventually flows into the Brahmaputra, which joins the Ganges before emptying into the Bay of Bengal, suggesting that continental cormorants may also have been present in northern India at the time. In addition, cormorant remains dating to 7,000–4,500 BP have been found in the lowlands of eastern China (Liang et al. 2023).
Taken together, this provides further support for the possibility that, well into the Holocene, there were still two geographically distinct cormorant populations or subspecies separated by the Central Asian highlands. By this point, the dispersal barrier between the northeastern and western cormorant populations was approximately 4,500 kilometres wide. The narrowest point in this barrier may have been the approximately five-kilometre-high Karakoram Pass near the headwaters of the Ganges, adjacent to the Karakoram range. This would have had to be crossed in order to reach the wetlands of Kyrgyzstan.
A massive natural dispersal barrier between Europe and Asia for the great cormorant
The mountains, steppes, dry steppes and deserts of the western and Central Asian highlands together form a contiguous area of approximately 9 million square kilometres spanning several zoogeographical zones, most of which do not constitute attractive cormorant habitat. This geographical barrier is of considerable importance when considering the evolutionary history and dispersal patterns of the great cormorant.
Allopatric speciation typically occurs when a physical barrier to dispersal arises within the range of a species, separating populations and restricting gene flow. For example, there may once have been an uninterrupted distribution of the ancestors of the great cormorant across the Eurasian continent, from Europe to Japan, before the Indian subcontinent collided with Eurasia, creating the Himalayas and raising the Central Asian highlands to approximately their present elevation 13–15 million years ago during the Miocene. In this process, the two populations may have become effectively physically separated, eventually giving rise to the ancestors of the atlantic great cormorant in the west and the continental great cormorant in the east.
It is difficult to imagine either the eastern or western cormorant crossing this region without human assistance. One hypothetical explanation for natural dispersal would be that the continental cormorant subsequently spread westward around the northern edge of the Central Asian mountain ranges, through southern Siberia, during the Holocene Thermal Maximum (10,300–7,900 BP). But if this were the case, one would also expect to find subfossil remains of great cormorants throughout the 4,200-kilometre-wide and approximately 3,000-kilometre-long belt between Lake Baikal and Europe, as well as a more continuous present-day distribution across this region. Neither is the case, despite approximately 37 archaeological excavations of Pleistocene layers in the area (Tyrberg 1998), as well as 22 archaeological excavations of Holocene bird remains dating from the 5th to the 17th centuries along the Volga River (Galimova et al. 2014), which forms the boundary between Europe and Asia north of the Caspian Sea.
The fact that great continental cormorants appear unlikely to have spread naturally westward through the northern part of the East Asian section of the great Palearctic zoogeographical bird region (Holt 2023) is readily explained by the fact that the area is, on average, simply too cold. It is therefore unlikely to be a coincidence that the present-day northern pan-Eurasian distribution of the continental cormorant almost exactly follows the southern edge of this zoogeographical bird region, which is based on both distributional and phylogenetic data from a wide range of Eurasian bird species.
There is, however, a present-day occurrence of continental great cormorants in the southern part of the Palearctic bird region between Tyumen in Russia and Shalkar in Kazakhstan. This area lies so far west of the Central Asian dispersal barrier that it does not support the idea of natural eastward dispersal by continental cormorants along this route. And had they arrived during the warmer period between 10.300 and 7.900 BP, one would also expect to find cormorant remains in the numerous excavations mentioned above. This part of the current breeding range may more plausibly have resulted from a westward expansion of the species’ range mediated by human activity.
The interactive map of ongoing cormorant observations across the region, including migration periods, provided by Bird Count India, offers a good visual representation of the absence of continental great cormorants across the Central Asian dispersal barrier. It also illustrates very clearly that the northern Central Asian breeding populations of continental great cormorants likewise fly around the barrier on their way to their southern wintering grounds.
Data from ringed European atlantic great cormorants, as presented on Migration Atlas, likewise provide little support for the idea that the two original Eurasian cormorant populations could have mixed simply through accidental dispersal during maigrations. Furthermore, the prevailing winds across the Central Asian plateau blow from west to east, which further reduces the likelihood that an east-to-west crossing of the Central Asian dispersal barrier could have occurred naturally — for example, through a vagrant individual from the eastern population.
It therefore appears unlikely that the two great cormorant populations, which were separated at the time, mixed naturally during either the Pleistocene or the Holocene. This leaves human-mediated dispersal as the most plausible explanation for the present-day distribution pattern. See also the excellent overview of great cormorant distribution on eBird.

This is how the eastern subspecies of the Great Cormorant — the continental cormorant (Phalacrocorax carbo sinensis) — may have spread from Asia to Europe with human assistance: The areas marked in blue represent the original distribution ranges of the Great Cormorant (Phalacrocorax carbo sp.), based on subfossil remains from the Pleistocene and Holocene (in Asia, the range has been roughly extrapolated from a limited number of finds): the Great Cormorant (Phalacrocorax carbo carbo) in western Europe and the continental cormorant in the Far East.
Marked in red is the Central Asian Dispersal Barrier — a vast, continuous region of high mountains, deserts and dry steppes that apparently originally separated the continental cormorant and Great Cormorant geographically, allowing them to develop into two distinct subspecies. The continental cormorant, which therefore appears unlikely to have been able to disperse naturally from east to west, may instead have been introduced through diffuse, human-mediated dispersal along the many overland (yellow) and maritime (blue) routes of the Silk Road. The thin dark-blue route represents Vasco da Gama’s sea route around the southern tip of Africa, which opened in 1498.The routes have been drawn schematically, based on the proposed trade routes of numerous historians. Following its arrival in Europe, the hypothesis is that the continental cormorant may have spread both westward and northwestward through a combination of “natural” and human-mediated dispersal. Illustration: Adobe Stock/Martin Millinge.
Did the two great cormorant subspecies spread through trade from east to west — or vice versa?
The present-day distribution of the continental great cormorant, as shown by BirdLife’s data zone, extends more or less continuously from Ireland in the west to Japan in the east, although there are considerably larger gaps in its distribution, particularly across West and Central Asia.
But we have just seen that the two subspecies were separated by a natural dispersal barrier more than 4,000 kilometres wide as recently as 4,000 years ago. The question, therefore, is whether the eastern population spread westward — or vice versa.
Evidence for cormorant fishing with domesticated continental cormorants dating back to 2,200 BP (He and Gremillet 2009), combined with extensive trade in these birds between all provinces of China (Gudger 1926), makes it highly plausible that they could have spread through local trade networks all the way to the great Central Asian dispersal barrier in the west. With human assistance, they may also have crossed the barrier and reached the western Asian steppes — even without any European demand for them.
Knowledge of cormorant fishing — and thus the potential beginnings of European demand for domesticated Asian continental cormorants — had nevertheless reached Europe by the middle of the 13th century at the latest, through the Dutch explorer William van Ruysbroeck (Olbur 2008). This, combined with extensive trade with chinese continental great cormorants for fishing, driven by regional and perhaps also emerging international demand, makes it plausible that Asian continental great cormorants were gradually, and perhaps in many separate waves over several centuries, transported westward by local traders and/or larger trading caravans along the Silk Road. They may have progressed in stages until eventually reaching the oases of fx Kyrgyzstan and, later, the Caspian Sea, from where they could have spread further westward “naturally” — without further human assistance.
The opposite scenario — the eastward dispersal of atlantic great cormorants from the west — appears unlikely. For one thing, the atlantic great cormorant does not currently have a distribution extending into either western or eastern Asia. More importantly, the present-day pattern suggests that the continental cormorant has gradually been moving its range farther north, northwest and northeast. There is no indication that the atlantic great cormorant was ever a traded commodity that could have been transported eastward.
There is therefore little evidence to suggest that the presence of continental great cormorants west of the Central Asian dispersal barrier is natural. Conversely, there is a strong basis for arguing that Asian continental great cormorants used for fishing could have been introduced into Europe either through direct importation (Olbur 2008) or through the gradual, diffuse, human-assisted dispersal outlined above.
Indeed, it seems almost implausible that such an obvious shortcut to several highly prestigious status symbols — involving a species so conspicuous and exotic in its use to Europeans — would not have been imported into Europe in one way or another over such a long period, just as other Asian bird species, such as pheasants and peafowl, were transported westward.

In the summer, it is primarily the Great Cormorant (*Phalacrocorax carbo sinensis*) that breeds in Denmark; however, during the autumn, there is a massive migration of cormorants into the country from surrounding regions, and later in the winter, many birds from the north overwinter here—including a number of the nominate subspecies Phalacrocorax carbo carbo.
Marcus Beike does not disprove Christer Olburs’ theory of the introduction of Asian continental great cormorants
Olburs’ theory (2008) proposed that European seafarers in the 15th and 16th centuries introduced Chinese fishing cormorants to the Netherlands, after which cormorant fishing — essentially the fishermen’s equivalent of “underwater falconry” — spread as a gentleman’s sport among European elites and royal courts throughout the 16th–19th centuries. Escaped birds could readily have become the source of the European population of continental cormorants.
The chronology and scenario fit well with the possibility that this may have occurred in the wake of Vasco da Gama’s discovery of the sea route to India in 1498, followed by Jorge Álvares establishing direct maritime trade routes to China in 1513. However, although the scenario is plausible, Christer Olburs’ theory never really gained widespread acceptance — probably largely because the German researcher Marcus Beike (2024) was considered to have refuted it.
Beike neither proves nor establishes that the continental great cormorant is native to Europe
Marcus Beike presented, among others, three main criticisms of Olburs’ theory:
1) There was no concrete evidence of a specific, documented shipment taking place at the appropriate time to support Olburs’ theory. This is correct, insofar as the earliest currently known written account of a specific and successful shipment of Chinese fishing cormorants from Asia to Europe dates to 1880 (Gudger 1926).
2) Beike argued that the Dutch fishing cormorants actually originated from birds captured and subsequently trained in England (Beike 2014), which could, in principle, quite plausibly have been atlantic great cormorants (Phalacrocorax carbo carbo).
3) Medieval accounts from 840 and 990 — the latter representing the earliest description of a cormorant in the European natural environment — together with references from the 12th–16th centuries, including the first European description of cormorants breeding in 1377, indicated to Beike that “continental great cormorants” were already present in Europe before the period in which Olburs proposed that they could have been introduced: “The analyses show that there is no evidence for the introduction of birds from China. Instead, a medieval breeding record as well as regular appearance of the cormorant in religious and secular literature from the middle ages show that the bird was at least temporarily well-known in deeper inland regions of the German-speaking area.” This led him to conclude that the evidence raised strong doubts about the hypothesis that Phalacrocorax carbo sinensiswas an introduced species.
This conclusion has subsequently been (incorrectly) interpreted by some as proof that the continental cormorant was originally native to Europe. The fact is, however, that Beike (2014) does not prove this. What his analysis actually establishes is simply that, so far, no documentation has been found for a specific shipment of Chinese continental cormorants to Europe. That does not establish whether the cormorants present in Europe at the time were sinensis or carbo.
Nor do the written sources referring to European cormorants in medieval Central Europe document or make it particularly likely that these birds were sinensis. There are several reasons for this.
First, sinensis was not formally defined as a subspecies by Blumenbach until 1798 — many centuries after the medieval accounts in question.
Second, reports of cormorants nesting in trees do not demonstrate that the birds involved were sinensis. Tree nesting is not a sufficiently conservative trait from an evolutionary perspective to serve as reliable evidence of subspecies identity. Both subspecies have been documented nesting on the ground, on cliffs and in trees (Brown 1935; Berrow et al. 2024, among others).
Third, the theory of gradual westward expansion through Europe, driven by competitive displacement, provides a plausible alternative explanation. What we today regard as the atlantic great cormorant’s principal breeding habitat — particularly cliffs — could simply be the result of sinensis gradually displacing carbo northwestward into the Atlantic region. In practical terms, coastal cliffs would have been among the most obvious, secure and readily available nesting habitats remaining there.
If Beike’s personal interpretations are set aside, none of the factual information presented in his articles is actually incompatible with a theory in which continental great cormorants of Asian origin gradually spread through Europe and progressively displaced Great Cormorants over a period perhaps spanning fx 500–1.500 years.

An adult cormorant eats an average of about half a kilogram of fish a day—and is particularly fond of fish like perch, such as the one you see here. Photo: Adobe Stock.
Direct and diffuse dispersal theories for the spread of continental cormorants from Asia to Europe are not mutually exclusive
The two proposed models for the human-mediated spread of Asian continental cormorants into Europe — diffuse dispersal and direct introduction — are not inherently contradictory. Nor does one exclude the other.
Even if domesticated Asian continental great cormorants were very likely transported to Europe through trade over many centuries, across a broad network of trans-Asian trading routes, this does not rule out the possibility that specific direct shipments were also commissioned or undertaken by Europeans. We simply have not yet found documentary evidence of such shipments.
The earliest recorded example illustrating European interest in this possibility is a Dutch envoy who, as early as 1655–57, attempted to purchase a fishing cormorant in China (Gudger 1926). The owner refused to sell the bird, but the episode clearly demonstrates that there was already European interest in obtaining “fishing cormorants.” It is therefore entirely possible that historical documents documenting direct shipments of fishing cormorants from China to Europe do exist, but have either been lost or have simply not yet been discovered.
As the digitisation of historical documents accelerates, combined with rapidly improving AI-assisted translation and searches of original sources from across Eurasia and East Africa — regions to which many of the maritime Silk Road routes also extended — it is quite conceivable that substantially more information will emerge in the future. Such discoveries could shed new light on the possible trade and human-mediated dispersal of fishing cormorants from east to west.
The Silk Road — diffuse human-mediated dispersal of continental great cormorants from Asia to Europe
As mentioned, cormorant fishing was widespread among poor communities throughout China, while Asian continental cormorants were traded extensively between all of China’s provinces and presumably in many other parts of Asia as well. There must therefore have been enormous numbers of domesticated continental cormorants in the Far East — perhaps as early as the 5th–10th centuries, or even considerably earlier. With such large numbers of domesticated birds, and the resulting potential for escapes, wild populations of continental great cormorants in Asia may also have carried a significant proportion of domestication-related genes associated with highly efficient, selectively bred fishing abilities.
In my view, diffuse dispersal through both time and space — whereby trade between neighbouring villages gradually transported domesticated birds, or genes carried by escaped and subsequently wild birds, farther and farther westward — is therefore highly plausible. This may have occurred in stages of just a few kilometres at a time, either overland or with the cormorants transported in small boats.
Along the way, and over the course of many years, escaped domesticated birds may have interbred with wild birds and established small local populations. Birds from these populations may subsequently have been captured and trained again, then transported farther west, and so on. Such a process could have continued continuously for many hundreds, or perhaps more than a thousand, years.
It may have occurred along countless parallel routes, connected to some of the north–south-oriented trade routes that eventually converged with the main Silk Road routes across the Central Asian highlands. From there, the birds could readily have been transported with human assistance along the many branches of the Silk Road — for example to oases and wetlands in Tajikistan, Kyrgyzstan and the border region between Xinjiang and Kazakhstan, where the birds would have had access to abundant water and fish.
This could have happened via the northern routes, as well as via the southern Silk Road through the Ganges Valley and across the Karakoram Pass to the same region.
A gradual, human-mediated dispersal over shorter distances may, in practical terms, have been easier than long, uninterrupted journeys. Obviously, the more stops there were along the way, the easier it would have been to keep the cormorants alive and in good condition by providing them with food and water.
He (2009), however, notes that the diet of young cormorants was often supplemented with tofu, a food that has been consumed in China for approximately 2,000 years. Tofu could therefore readily have been used to keep cormorants alive during longer journeys, where low weight, limited space requirements and shelf life would have been crucial: Tofu can be dried and stored for up to a year before being rehydrated in water prior to consumption. These properties could conceivably have made it easier to transport food for the cormorants over long distances through arid regions. Even at the smallest spring, stream or oasis where no fish were available, traders could have supplemented the birds’ diet — or fed them rehydrated, air-dried tofu — allowing them to survive the journey.
From the Central Asian oases and wetlands, continental cormorants could either have been transported and traded farther west, and/or established wild populations from escaped birds. These populations could gradually have expanded westward through wetland corridors, combined with shorter flights across dry areas to reach new suitable habitats farther west across the steppes of western Asia.
In this way, Asian continental cormorants may eventually have reached the Caspian Sea and potentially what was once the eastern edge of the original range of the atlantic great cormorant, represented by subfossil great cormorant remains from Azerbaijan (Tyrberg 1998).
Another obvious route westward would have involved overland transport combined with the many shorter stages of the maritime Silk Road. Through the ports of India and the Middle East, Asian continental cormorants could gradually have been transported as far as the Red Sea and Egypt. There, they would have reached what may originally have been the southeastern range of the western great cormorant — a possibility supported, as mentioned earlier, by Pleistocene finds from Egypt and Holocene finds from Saudi Arabia.

Today there are approximately 30.000 breeding pairs of cormorants in Denmark.
The continental great cormorant arrives from the east and conquers Europe
If this theory is correct, and the Asian continental great cormorant gradually conquered Europe from southeast to west and north, either as a breeding species and/or as a resident population, then the Asian continental great cormorant must have possessed a particularly significant advantage.
How else could it potentially have outcompeted the somewhat larger Great Cormorant as it expanded westward? In many cases, larger animals of the same type tend to dominate smaller ones. One possible answer may lie in the fact that, for perhaps more than 2,000 years, humans have artificially selected continental great cormorants very strongly for superior fishing efficiency.
Studies have shown that increased foraging efficiency, unsurprisingly, results in greater breeding success (Daunt et al. 2007) — and could therefore also provide a greater capacity to expand its range by subjecting the atlantic great cormorant to intense interspecific competition.
Domesticated continental great cormorants in Asia were forced and trained to catch far more fish than wild birds because they first had to catch fish for human consumption and then catch additional fish for themselves and their offspring. Based on extensive studies of Chinese literature and field observations, He and Grémillet (2009) report that a cormorant often had to catch around eight fish before it was allowed to keep one for itself — typically one of the smaller fish. From a purely fishing perspective, Chinese fishing cormorants therefore had to perform considerably more than wild great cormorants, which “only” had to catch enough fish for themselves and their offspring.
As with other animals domesticated by humans over thousands of years, the best-performing continental cormorants would naturally have been selected for breeding. Over hundreds of generations, this could have resulted in strong directional selection for increasingly efficient fishing abilities, potentially giving Asian continental great cormorants a set of characteristics that subsequently enabled them to outcompete the Great Cormorant.
The Baltic Sea — when the great cormorant disappeared and the continental great cormorant took over
The distribution pattern we see today, in which the continental cormorant has progressively expanded farther westward and northward through Europe, fits well with the theory that the Asian continental great cormorant gradually replaced the original atlantic great cormorant from the east. This is also consistent with earlier studies (Stewart 2002; Ericson & Carrasquilla 1997).
Based on extensive morphometric studies of cormorant bones from the Baltic region, the latter authors were able to establish that up until the 13th–15th centuries, and perhaps considerably later, the Baltic region was inhabited exclusively by Great Cormorants. The last documented record is depicted in a painting from 1695 (Olburs 2008).
Ericson and Carrasquilla link the disappearance of the Great Cormorant to a decline in the salinity of the Littorina Sea:
“Maybe the salinity sank below some threshold value after 1500 AD causing the P. c. carbo to cease breeding in the Baltic. Simultaneously, the environment slowly transformed into that preferred by P. c. sinensis, which seems to have colonized the region soon after.”
This interpretation, however, does not fit well with palaeosalinity models and proxy values for Baltic Sea salinity during the same period (Vestmand et al. 1999). These indicate that salinity in the Baltic Sea has remained essentially unchanged since the 6th century. And even when salinity peaked in the Baltic approximately 5.000–6.000 BP, it was apparently not too high for a continental cormorant, judging from where the subspecies normally breeds and forages today — both in the Atlantic and in the oceanic salinity found along the Chinese coast.
The potential competitive advantage of the continental great cormorant over the atlantic great cormorant is therefore unlikely to have been related to lower salinity. If it were, one would expect to see an increasing proportion of continental great cormorants in the bone assemblages throughout the Subboreal (5.000–2.500 BP) and Subatlantic (2.500 BP to present) periods, leading up to the point when the continental cormorant eventually became the dominant breeding subspecies in the Baltic region. This is not the case.
If salinity really was a decisive factor for the two cormorant subspecies, it also seems peculiar that the atlantic great cormorant apparently has no problem today overwintering and foraging in precisely the same salinity conditions that it supposedly abandoned in the 13th–15th centuries — or perhaps not until as late as the 17th–18th centuries.
This could indicate that the transition from an original atlantic great cormorant population in the Baltic region to an increasing dominance of continental great cormorants at breeding colonies from around the 17th–18th centuries was actually caused by other factors. One possibility is that this period simply happens to coincide with the point at which the continental cormorant, during its gradual conquest of Europe toward the north, reached the Baltic Sea.
The continental cormorant was first recorded in Denmark, Sweden, England, Finland, the Baltic States and Norway at various points between the 19th century and the end of the 20th century. The fact that the first specimens identified to subspecies in these regions date from this period does not necessarily tell us much about the precise year of arrival. It may instead be an artefact of the fact that the continental great cormorant was not formally defined as a subspecies until 1798, followed by increasing awareness of whether an observed great cormorant belonged to one subspecies or the other. Even with the best binoculars available today, and a trained eye, the two subspecies can be extremely difficult to distinguish in the field.

Even for trained ornithologists, it is difficult to distinguish between the atlantic great cormorant and the continental great cormorant – nor is it possible to tell them apart based on individual bone finds, due to the significant size difference between males and females and the substantial overlap between the two species. Only through extensive morphometric studies based on a large statistical dataset is it possible to determine which species is present in a given area.
Allopatric subspecies differentiation in cormorants is more plausible than sympatric differentiation
Today, the two subspecies, atlantic great cormorant and continental great cormorant, occur sympatrically in Europe — that is, they occupy the same geographical areas without an impassable natural dispersal barrier separating them.
If we assume that the continental cormorant was indeed native to Europe and had been present here for, say, hundreds of thousands of years, we would also need to explain how the separation between the two subspecies could have been maintained over such a long period. There would have to be some mechanism maintaining the distinction — for example, preferences for different habitats.
If a preference for saline coastal habitats versus freshwater inland habitats were the basis for the differentiation between the Great Cormorant and continental cormorant, we would expect two things:
- The formation of two similarly stable and distinct subspecies in China.
- If atlantic great cormorants and continental great cormorants had genuinely coexisted naturally in Europe for, say, hundreds of thousands of years, with their status as separate subspecies being stably maintained over time through niche differentiation based on preferences for saltwater and freshwater habitats, we would expect them not to hybridize, but instead to diverge genetically.
Neither of these predictions appears to be supported.
First, there is only one clearly established subspecies in China — the continental great cormorant — and it occurs both inland in freshwater habitats and along the East Asian coast, where it forages in waters with salinities of up to 30–40‰ (Huang 2025). The japanese great cormorant — Phalacrocorax carbo hanadae — which is almost identical to the continental great cormorant, is normally grouped together with the continental cormorant as sinensis/hanadae, since, as indicated above, there is uncertainty as to whether it actually constitutes a distinct subspecies.
Second, recent genetic studies have documented introgressive hybridization between Great Cormorants and continental cormorants in Norway and Britain (Winney et al. 2000; Grøndahl & Johnsen 2024). Rather than helping to maintain the distinction between the subspecies, such gene flow would instead tend to erode that distinction over time. Grøndahl and Johnsen (2024) conclude: “Our results suggests that gene flow is more common from sinensis into carbo than vice-versa…”
The snapshot we see in 2026 — with the majority of continental great cormorants occurring inland and around freshwater and brackish-water habitats, while the majority of atlantic great cormorants are found along the Atlantic coast — could therefore simply be an artefact of the eastern continental great cormorant having expanded westward, and toward the west and northwest through Europe, with human assistance and through interspecific competition.
The continental great cormorant — non-native and invasive in Europe?
Based on the current state of knowledge about the continental great cormorant, everything, in my view, currently points towards there being considerably more scientifically based evidence that the European continental great cormorant is non-native and potentially invasive than there is evidence that it was originally native to Europe.
A definitive clarification of the continental great cormorant’s dispersal history and its status as native or non-native in Europe will require an extensive genetic study — ideally involving aDNA from subfossil great cormorant remains from across Eurasia, combined with DNA analyses of contemporary great cormorants from throughout their present range.
However, this is unlikely to be straightforward. While a deliberate introduction of Asian continental cormorants, as proposed by Olburs (2008), would presumably leave a genetic bottleneck, a more diffuse, human-mediated dispersal across a broad front in both time and space would probably produce a far more diluted genetic signal.
Until the continental great cormorant’s dispersal history has been conclusively clarified through DNA analyses, there is, from a management perspective, an argument for applying the precautionary principle. For the time being, this should entail strong regulation of continental cormorant populations in Europe, so that they:
- are reduced to a population level that neither places the probably original atlantic great cormorant at risk of irreversible genetic contamination or dilution; nor
- negatively impacts existing native fishspecies, particularly those that are vulnerable.
This, together with the question of whether the EU Birds Directive should be revised, and whether the continental great cormorant should, from a management perspective, be formally categorized as an invasive species, will be the focus of the third and final article in the series, coming soon to fiskogfri.dk.
GREAT CORMORANT LITTERATURE:
Beike, M: “The history of Cormorant fishing in Europe”, Die Vogelvelt 133: 1-21 (digital engelsk version), 2012.
Beike, M: “Phalacrocorax carbo sinensis in Europe – indigenous or introduced?” Ornis Fennica 91: 48-56. 2014.
Berrow et al: ”Cormorants Phalacrocorax carbo breeding in Special Protection Areas in the Shannon Estuary and adjacent waters”, Irish Birds 47: 1–8, 2025.
Bliedtner, M. et al: “Holocene Temperature Variations in Semi-Arid Central Mongolia—A Chronological and Sedimentological Perspective From a 7400-year Lake Sediment Record From the Khangai Mountains”, Sec. Quaternary Science, Geomorphology and Paleoenvironment, Vol. 10, 2022.
Boev, Z.N: “The Holocene avifauna of Bulgaria (A review of the orni-archeological studies)”, Historia naturalis bulgarica, 6, 59-81, 1996.
Boev, Z.N: “Fossil birds in the National Museum of Natural History, Sofia: composition, development and scientific value. Zool. Med. Leiden 79-3 (4), 35-44, 30-ix. 2005.
Bregnballe, T og Gregersen, J: ” Udviklingen i ynglebestanden af Skarv Phalacrocorax carbo sinensis i Danmark 1938-1994#, Dansk Om. Foren. Tidsskr. 89: 119-134, 1995.
Browne, T: “An account of birds found in Norfolk. In Sir Thomas Browne´s works, Vol. 4 (ed. Wilkin, S) 311-323, Pickering, London.
Bulleid, A., & Gray, S. G: “The Glastonbury Lake Village”. Glastonbury Antiq. Soc. 2: 632-637, 1911-17
Daunt et al: “Older and wiser: improvements in breeding success are linked to better foraging performance in European shags”, Functional Ecology, vol. 21,3. 2007.
Ericson, G, P og Carrasquilla, H: ”Subspecific identity of prehistoric Baltic cormorants Phalacrocorax carbo”, Ardea 85: 1-7. 1997
Galimova, D, N et al: “Bird Remains from the 5th – 17th Century AD Archaeological Sites in the Middle Volga Region of Russis”, International Journal of Osteoarchaeology, Int. J. Osteoarchaeol., 2024.
Grøndahl, F, A og Johnsen, A: ”Combining biometrics and genetics to distinguish two subspecies of the Great Cormorant Phalacrocorax carbo carbo and P. c. sinensis at an inland lake in southeast Norway. Ornis Norvegica 47: 25-40, 2024.
He, L og Grémillet, D: ”A review of the current knowledge and status of tame Great Cormorants Phalacrocorax carbo in China”, BirdingASIA, 12, 103-106, 2009.
Holt et al: ”An Update of Wallace’s Zoogeographic Regions of the World”, Science 339, p. 76. 2013.
Huang, S et al: “Long-term monitoring data inform conservation strategies for waterbirds in the abandoned tropical salt pans of Budai, southwestern Taiwan”, Global Ecology and Conservation, 62:e03736, 2025.
Liang, Q. et al: ”Subsistence strategies in the Late Neolithic and Bronze Age in Nenjiang River Basin: A zooarchaeological and stable isotope analysis of faunal remains at Honghe site, Northeast China. International Journal of Osteoarchaeology, 1–14. 2023.
Monchot, H:” Arabian Animal Remains from the Bronze Age to the Historical Period: a State of Research”, In Athirat: Journal of Ancient Atabia 2 (2026) 165–196, 2026
Nomokonova, T:” A 9,000 Year History of Seal Hunting on Lake Baikal, Siberia: The Zooarchaeologyof Sagan-Zaba II, 2015.
Olburs, C: “The chinese cormorant Phalacrocorax carbo sinensis Blumenbach 1798 – An attempt to understand a complex biological question”, 2008.
Stevart, J, R: “Sea-birds from coastal and non-coastal, archaeological and“natural” Pleistocene deposits or not all unexpected depositionis of human origin”, Acta zoologica cracoviensia, 45(special issue): 167-178, Kraków, 2002.
Tyrberg, T. ”Pleistocene birds of Palearctic – a catalouge”, 1998.
Wang et al, “Ancient DNA insights into Neolithic bone-tool use on the Tibetan Plateau, Journal of Archeologival Science , article 106183, Vol. 177, 2025.
Westman et al: “Salinity change in the Baltic Sea during the last 8,500 years: evidence, causes and models”, Oceanus Havsundersökningar, Göteborg, 1999.
Winney, B, J er al: “The subspecific origin of the inland breeding colonies of the cormorant Phalacrocorax carbo in Britain”, Heredity 86, 45-52, 2001.
Zeder, M & Spitzer, M: ”New insights into broad spectrum communities of the Early Holocene Near East: The birds of Hallan Çemi“,Quaternary Science Reviews 151(2):140-159, 2016.
NOTES:
– Ericson and Carrasquilla (1997) mention three “sinensis” bones from Bulgaria (3,000 BP), which were used to investigate whether the continental cormorant may have changed in size over time. However, these do not document the presence of an original continental cormorant population in Europe, because reliable identification can only be achieved through larger-scale morphometric studies, as explained in Part 1. This is probably also why no Bulgarian subfossil collections contain Phalacrocorax carbo bones identified to subspecies level (Boev 1996 and 2005).
– Beike (2014) argues that a cormorant specimen found in inland Europe (Brehm, 1824), later identified by Claud B. Ticehurst (1923), was identical to Blumenbach’s type specimen of sinensis*. In my view, the discussion of why the continental cormorant was given the subspecies name* sinensis*, meaning “the Chinese cormorant,” is based on anecdotal ambiguity from which it is difficult to draw any firm conclusions. The origin of the name* sinensis is ultimately irrelevant, since there is substantial evidence that the subspecies could have spread to Europe with human assistance in several different ways — regardless of what its Latin name happens to be.
sep 11, 2026 | Artikler, Miljø og debat, Nyheder
Subfossile fund af skarv viser, at bestanden i Europa og Asien i forhistorisk tid var adskilt af en massiv naturlig spredningsbarriere i det centralasiatiske højland, som delte fuglene i to populationer. Alt taler for, at spredning af mellemskarv fra øst mod vest kun kan være sket ved menneskelig hjælp, hvormed der er god evidens for, at den europæiske mellemskarv ikke er en oprindelig del af den danske og europæiske natur.
AF JENS BURSELL, BIOLOG, FOTOS: LARS LAURSEN & ADOBE STOCK
Der findes – som afklaret i del 1 – hverken subfossil eller genetisk dokumentation for, at mellemskarven er en oprindelig del af den danske natur. Og – når det på basis af fåtallige knoglefund ikke er muligt at differentiere på mellem- og storskarv i Danmark, så gør det samme sig naturligvis også gældende i resten af Europa, hvor der p.t. heller ikke er hverken subfossil eller genetisk dokumentation for, at mellemskarven er en oprindelig del af naturen.
De fleste tidligere studier af den europæiske skarvs historie har fokuseret relativt snævert uden at se dens historie i et større tidsmæssigt og geografisk perspektiv. For at afklare mellemskarvens herkomst i/til Europa, er det derfor oplagt at kigge videre på subfossile fund, zoogeografiske zoner og naturlige spredningsbarrierer i Eurasien i forhistorisk tid gennem epokerne Holo- og Pleistocæn. Dette – kombineret med en evolutionær interdisciplinær vinkel – kan give et nyt evidensbaseret bud på spredningshistorikken for skarven – Phalacrocorax carbo samt dens to underarter storskarv (carbo ssp.) og mellemskarv (sinensis ssp.).

Diffus spredning af mellemskarv vestpå fra Asien mod Europa af mennesker fx via Silkevejen er en ud af flere mulige forklaringer på, hvordan den tidligere geografisk isolerede asiatiske mellemskarv kan have nået frem til Europa, hvor den sidenhen har spredt sig vidt og bredt. (AI GENERET – Jesper Fohrmann)
Diffus menneskelig og ”naturlig” spredning af mellemskarv fra Asien – vestpå til Europa
Mit bud på, hvad der bedst kan forklare den nuværende udbredelse af mellemskarv på verdensplan er, at storskarven er den oprindelige europæiske underart, som har været geografisk adskilt fra mellemskarven i Østasien af den store centralasiatiske spredningsbarriere. Herefter kan der være sket en gradvis og diffus spredning ved menneskelig hjælp fra Østasien over den centralasiatiske spredningsbarriere vestpå til Øst- og Sydeuropa over en længere periode på måske 500-1.000 år. Det kan både være sket langs Silkevejens omfattende net af landlige og maritime handelsruter – eventuelt kombineret med mere direkte transporter eller decideret import (Olburs 2008).
Herefter er det sandsynligt, at der kan have været sket (a) videre ”naturlig” og (b) unaturlig spredning af mellemskarv V, NV og NØ-over gennem Europa, hvor (a) mellemskarven gradvis har udkonkurreret storskarven og b) evt. direkte introduktioner fra Asien og/eller re-domesticering af ”vildt indvandrede” mellemskarv af asiatisk oprindelse har accelereret spredningen af mellemskarv yderligere nordover. Sidstnævnte kan oplagt være sket efter, at interessen for jagt med fiskeskarv eskalerede fra starten af 1500-tallet i Venedig (Olburs 2008, Beike 2013, 2014) og senere forstærket af interessen for skarvjagt i renæssancens Frankrig, Holland og England (Olburs 2008, Beike 2013, 2014).
Denne nye teori om gradvis indførsel af asiatiske mellemskarv til Europa over en bred front i tid og rum – kombineret med ”naturlig spredning” af dens asiatiske gener op gennem Europa er ikke i konflikt med faktuelle oplysninger og konkrete resultater fra tidligere studier, men underbygger og forklarer snarere en række af de hidtil ubesvarede spørgsmål, som tidligere undersøgelser og litteraturstudier har affødt. Her får du baggrunden for mit synspunkt:
7.500 km mellem europæiske og asiatiske skarv i Pleistocæn
Tidsalderen, der ligger før 11.700 år siden, hedder Pleistocæn. Her er der registreret fund af skarv i de fleste europæiske lande som fx England, Irland, Tyskland, Tjekkiet, Italien, Schweitz og Spanien samt Israel, Egypten og længst mod øst – Aserbajdsjan. De to tætteste fund fra Danmark var fra Bayern og Norfolk – begge cirka 800 kilometer væk (Tyrberg 1998).
I hele Central- og Østasien er der kun ét sted, hvor skarven er fundet i denne tidsperiode – nemlig Japan (Tyrberg 1998). Her er det iøjnefaldende, at der er masser af fund i Europa – ingen overhovedet i Vest- og Centralasien – og så to fund i Japan.
Allerede her er det oplagt at tænke, at den vestlige, europæiske/mellemøstlige underart kunne være forfader til storskarven (Phalacrocorax carbo carbo) og den østlige underart forfader til mellemskarven (Phalacrocorax carbo sinensis) – samt at de to oprindeligt har været allopatrisk adskilt af en cirka 5-6.000 kilometer bred naturlig spredningsbarriere gennem Irans ørkener og bjergkæder, Nordpakistans bjerge, bjergkæderne Hindu Kush, Karakoarm, Pamir, Alai, Tien-Shan med bagvedliggende Himalaya, Det Tibetanske Plateau, Talamakan og Gobi Ørkenen samt Mongliets højsletter. Endvidere har store dele af området fra Østsiden af Det Kaspiske hav til vestsiden af det centralasiatiske højland været tørre stepper og ørkner, hvoraf hovedparten har været uegnet skarvhabitat – hvilket yderligere har besværliggjort en øst-vest spredning af underarterne (se verdenskortet nedenfor)
Fraværet af Pleistocæne skarvfund i dette bælte tværs over Asien fra Japan til Aserbajdsjan skyldes ikke fravær af relevante udgravninger her, eftersom der er foretaget 37 udgravninger med analyser af subfossile fugleknogler fra Iran, Irak, Kazakhstan, Kirgisistan, Uzbekistan, Mongoliet, Kina og den asiatiske del af Rusland (Tyrberg 1998) – uden at der er fundet én eneste skarv.

Når skarver trækker, flyver de i snit cirka 60-100 kilometer om dagen, inden de slår sig ned i et vådområde for at hvile og fouragere på friskfangede fisk. Selvom skarven kan flyve op til flere hundrede kilometer i et stræk, er det således usandsynligt, at den østlige underart af skarv – mellemskarven – skulle have spredt sig naturligt over den mange tusinde kilometer tørre og høje centralasiatiske spredningsbarriere, der ligger mellem de to oprindelige udbredelsesområder – Europa/Mellemøsten og den geografisk isolerede population i fjernøsten.
Europæiske og asiatiske skarv i Holocæn 11.700 år tilbage i tiden
Holocæn byder også på mange fund af skarv i Europa (Bregnballe og Gregersen 1995, Ericson og Carrasquilla 1997, Bullied og Grey 1911-17, Stewart 2002).
Søger man efter asiatiske subfossile fund af skarv fra Holecæn, er der fund fra SØ Tyrkiet ved Øvre Tigris 11.700-10.500 BP (Zeder & Spitzer 2016) samt Saudi Arabien fra cirka 5.000 BP (Monchot 2026), der oplagt kunne tilhøre den vestlige storskarv. NØ for dette områder ligger Den Persiske Golf samt ørknerne i Iran og Afghanistan som en massiv spredningsbarriere NØ på i retning af de centralasiatiske plateau.
Endvidere er der fund fra 9.020-8.650 BP fra Baikal Søen i Sibirien (Nomokonova et al. 2015), men da dette fund ligger nord for den nuværende nordligste udbredelse – sandsynligvis på grund af det Holocæne temperatur maximum, der netop lå fra 10.300 – 7.900 BP, er dette fund mindre relevant i forhold til historikken omkring evt. menneskelig spredning af mellemskarv vestpå, da dette var langt før den tid, hvor skarverne blev domesticeret (diskuteres nedenfor). Den koldeste periode på det nordcentralasiatiske plateau lå fra 4.000-200 BP (Bliedtner 2022), hvilket netop må have gjort det ekstra svært for kinesiske mellemskarv/fiskeskarv at sprede sig naturligt vestpå i de par tusind år, hvor skarvdomesticeringen kan været opstået samt udviklet – og eksakt samme periode, hvor handelen på Silkevejen toppede.
Desuden er der subfossile fund af skarv fra Asien fra 4.000 BP verificeret med aDNA fra Det Tibetanske Plateau 300 km vest for Lhasa (Wang et al. 2025). Disse kunne oplagt være en del af den østlige mellemskarv. Lhasa floden ender i Brahmaputra, som flyder sammen med Ganges inden udmundingen i Den Bengalske Bugt, hvilket indikerer, at der sikkert også har været mellemskarv i Nordindien på det tidspunkt. Hertil kommer fund fra 7.000-4.500 BP fra det østkinesiske lavland (Liang et al. 2023).
Dette underbygger yderligere, at der også langt senere hen i Holocæn sandsynligvis stadig har været to populationer eller underarter af skarv – adskilt af det centralasiatiske højland. På dette tidspunkt var der nu en 4.500 kilometer bred spredningsbarriere mellem den nordøstlige og vestlige bestand af skarv. Det smalleste sted på spredningsbarrieren har været det cirka fem kilometer høje Karakoram Pas ved kilderne af Ganges op imod bjergkæden Karakoram, der ville skulle passeres, for at komme ned til vådområderne i Kirgisistan.
En massiv naturlig spredningsbarriere mellem Europa og Asien for mellemskarven
Det vest- og centralasiatiske højlands bjerge, stepper, tørstepper og ørkener udgør i alt et sammenhængende areal på omtrent 9 millioner kvadratkilometer gennem flere zoogeografiske zoner, hvoraf hovedparten ikke er attraktive skarvhabitater. Netop denne geografiske barriere har stor betydning, når man skal forholde sig til skarvens evolution og spredningshistorik.
En allopatrisk arts- eller underartsdannelse sker typisk, når en fysisk impassabel spredningsbarriere opstår inden for en arts udbredelsesområde. Eksempelvis kunne der have været en ubrudt udbredelse af forfædrene til skarven over det Eurasiske kontinent fra Europa til Japan, inden Det Indiske Subkontinent kolliderede med Eurasien, og skabte Himalaya samt hævede det centralasiatiske højland til det niveau, det er i nu for 13-15 millioner år siden under Miocæn. I denne proces blev underarterne effektivt fysisk adskilt som forfædrene til hhv storskarv i vest og mellemskarv i øst.
Det er svært at forestille sig, at den østlige eller vestlige skarv, skulle have krydset dette område uden menneskelig hjælp. En hypotetisk forklaring for naturlig spredning kunne være, at mellemskarven efterfølgende havde spredt sig naturligt vestpå nord om de centralasiatiske bjergområder gennem det sydlige Sibirien i det Holocæne temperaturmaximum (10.300 – 7.900 BP). Men – hvis det var tilfældet, så ville man også forvente at se subfossile fund af skarv/mellemskarv i det 4.200 kilometer brede og 3000 kilometer høje bælte mellem Baikal og Europa samt en mere sammenhængende nutidig udbredelse her. Ingen af delene er tilfældet, på trods af cirka 37 arkæologiske fugleudgravninger af Pleistocæne lag i området (Tyrberg 1998) – samt 22 arkæologiske Holocæne udgravninger af fugle fra 500-1.700 tallet omkring Volgafloden (Galimova et al. 2014), der danner grænse mellem Europa og Asien nord for Det Kaspiske Hav.
At mellemskarverne således næppe har bredt sig naturligt mod vest nordover gennem den østasiatiske del af den store palæarktiske zoogeografiske zone for fugle (Ben Holt et al. 2013), skyldes oplagt, at det gennemsnitligt er for koldt her. Det er således næppe tilfældigt, at mellemskarvens nuværende nordlige pan-eurasiske udbredelse nærmest eksakt følger sydkanten af denne zoogeografiske fuglezone, som er baseret på data for både udbredelse og fylogeni af en lang række eurasiske fuglearter. I den nutidige udbredelse af mellemskarv er der dog en forekomst i den sydlige del af den palæarktiske zoogeografiske fuglezone mellem russiske Tjumen og Kazakhstanske Shalkar. Dette område dog ligger så langt vest for den centralasiatiske spredningsbarriere, at det ikke sandsynliggør en naturlig spredning mod øst af mellemskarv denne vej, og var den kommet i den varmere periode fra 10.300 – 7.900 BP, ville man også forvente fund af skarv i de førnævnte mange udgravninger i regionen. Denne del af det nuværende yngleområde kan mere oplagt være afledt af en vestlig ekspansion af udbredelsesområdet medieret af menneskelig aktivitet.
Bird Count Indias interaktive kort over løbende skarvobservationer hen over hele året i regionen – inklusiv trækperioderne, giver en god visualisering af fraværet af mellemskarv over den centralasiatiske spredningsbarriere – samt illustrerer meget godt, at de nordlige centralasiatiske ynglepopulationer af mellemskarv også flyver uden om spredningsbarrieren på vej mod de sydlige overvintringspladser. Data på ringmærkede europæiske skarv, som ses på migrationatlas.org, sandsynliggør heller ikke, at opblanding mellem de to oprindelige Eurasiske skarvpopulationer, kan være sket ved et simpelt fejltræk. At den fremherskende vindreting på det centralasiatiske plateau går fra vest mod øst undersøtter usandsynligheden for, at en spredning over den centralasiatiske spredningsbarriere fra øst mod vest kan være sket naturligt ved eksempelvis et fejltræk i den østlige population.
Det forekommer således usandsynligt, at de to dengang adskilte skarvbestande har blandet sig naturligt hverken i Pleisto- eller Holocæn, hvilket kun efterlader den mulighed, at det nutidige udbredelsesmønster vi ser i dag sandsynligvis er betinget af menneskelig spredning. Se også et godt billede af udbredelsen af skarv på ebird.org.

Sådan kan den østlige underart af skarv – mellemskarven (Phalacrocorax carbo sinensis) – have spredt sig fra Asien til Europa ved menneskets hjælp: Med blåt er markeret de oprindelige udbredelsesområder af skarven (Phalacrocorax carbo sp.) baseret på subfossile fund gennem Pleisto- og Holcæn (i Asien groft extrapoleret ud fra få fund): Storskarven (Phalacrocorax carbo carbo) mod vest i Europa og mellemskarven i fjernøsten. Markeret med rødt ses Den Centralasiatiske Spredningsbarriere – et stort sammenhængende områder af høje bjerge, ørkner og tørre stepper, der tilsyneladende oprindeligt har adskildt mellemskarv og storskarv geografisk, hvorved de har udviklet sig til to selvstændinge underarter. Mellemskarven – der således næppe har kunnet sprede sig naturligt fra øst mod vest, kan således have være indført via diffus human-medieret spredning af silkevejens mange landlige (gule) og maritime (blå) ruter. Den tynde mørkeblå rute er Vasco da Gamas sørute syd om Afrika, der åbnede i 1498. Ruterne er indtegnet med løs hånd på baggrund af adskillige historikeres bud på handelsruterne. Efter ankomsten til Europa er hypotesen, at mellemskarven kan have bredt sig både Vest og Nordvestover som en kombination af “naturlig” og menneskelig spredning. Illustration: Adobe Stock/Martin Millinge.
Har de to underarter af skarv spredt sig med handel fra øst mod vest – eller omvendt?
Den nutidige bestand af mellemskarv er som vist på datazone.birdlife.org vidt udbredt mere eller mindre kontinuerligt fra Irland i Vest til Japan i øst – dog med en del større huller i udbredelsen især tværs over Centralasien.
Men – vi har lige set, at de to underarter var adskilt af en over 4.000 kilometer bred naturlig spredningsbarriere for 4.000 år siden, så spørgsmålet er, om den østlige population har bredt sig mod vest – eller omvendt?
Dokumentation for fiskeri med domesticerede mellemskarv siden 2.200 BP (He og Gremillet 2009) kombineret med omfattende handel med disse mellem alle Kinas provinser (Gudger 1926) sandsynliggør, at de med meget stor sandsynlighed kan have spredt sig med lokal handel hele vejen op til den store centralasiatiske spredningsbarriere mod vest – samt med menneskelig hjælp sandsynligvis også over denne og frem til de vestasiatiske stepper – selv uden efterspørgsel fra Europa.
Viden om skarvfiskeriet – og dermed også kimen til en potentiel efterspørgsel på domesticerede asiatiske mellemskarv – nåede dog allerede Europa senest i midten af 1200-tallet med den hollandske opdagelsesrejsende William van Ruysbroeck (Olburs 2008). Dette – kombineret med en omfattende handel med kinesiske mellemskarv til fiskeri forårsaget af regional og måske også spirende international efterspørgsel – sandsynliggør, at asiatiske mellemskarv gradvist og måske i mange omgange over adskillige århundreder kan have været ført med lokal transport og/eller måske større handelskaravaner på Silkevejen trinvist videre vestpå, indtil de til sidst er nået de kirgisiske oaser og senere Det Kaspiske Hav, hvorfra de kan have bredt sig videre ”naturligt” vestover – selv uden menneskelig hjælp.
Det omvendte – spredning af storskarv fra vest mod øst, forekommer usandsynligt. Dels fordi storskarven ikke p.t. har hverken vest- eller østasiatisk udbredelse, men også fordi det nutidige billede mere tyder på, at mellemskarven gradvist rykker sin udbredelse længere og længere N, NV og NØ over. Intet tyder på, at storskarv på noget tidspunkt har været en handelsvare, der potentielt set kunne have gået i østlig retning.
Der er altså ikke meget, der sandsynliggør, at mellemskarvens forekomst vest for den store centralasiatiske spredningsbarriere skulle være naturlig. Omvendt er det let at argumentere for at asiatiske mellemskarv til fiskeri kan være indført til Europa enten via direkte import (Olburs 2008) eller som diffus gradvis spredning via menneskelig hjælp, som skitseret ovenfor. Ja – faktisk forekommer det næsten usandsynligt, at en for europæere så opsigtsvækkende genvej til flere elitære statussymboler over en periode på så mange år ikke skulle være importeret til Europa på en ene eller anden måde – præcis som andre asiatiske fuglearter som fx fasan og påfugl er fragtet vestpå.

Om sommeren er det primært mellemskarv der yngler i Danmark, men over efteåret er der et kæmpe skarvtræk fra de omkringliggende lande i Danmark og senere på vinteren også mange overvintrende fugle nordfra, hvoraf en del er storskarv.
Marcus Beike beviser ikke, at Christer Olburs tese om indførsel af asiatiske mellemskarv er forkert
Olburs teori (2008) gik altså ud på, at europæiske søfarere i 15-1600-tallet – havde indført kinesiske fiskeskarv til Holland, hvorefter skarvfiskeri – fiskernes ”UV-falkonerjagt” – bredte sig som en gentlemansport blandt de europæiske eliter og hoffer op gennem 16-1800-tallet – hvilket via fx undslupne fugle oplagt kunne have været ophavet til den europæiske bestand af mellemskarv.
Årstallet og plottet passer godt med, at dette kunne være sket i kølvandet på Vasco Da Gamas opdagelse af søvejen til Indien i 1498, og at Jorge Álvares i 1513 havde indført direkte ruter for skibshandel til Kina. Men – selvom plottet er oplagt, fik Christer Olburs teori aldrig rigtig gennemslagskraft – nok især fordi tyskeren Markus Beike (2024) mente at tilbagevise Olburs teori.
Beike hverken beviser eller sandsynliggør, at mellemskarven er hjemmehørende i Europa
Marcus Beike havde bl.a. følgende tre hovedkritikpunkter: 1) At der ikke var konkret bevis for en specifik dokumenteret transport på det rette tidspunkt i forhold til hans teori, hvilket er korrekt, efter som der p.t. først eksisterer en skriftlig beretning om en konkret vellykket fragt af kinesiske fiskeskarv fra Asien til Europa i 1880 (Gudger 1926). 2) At de hollandske fiskeskarv i virkeligheden stammede fra engelsk indfangede og derefter trænede fiskeskarv (Beike 2014), som i princippet meget oplagt kunne have været storskarv. 3) Beretninger fra middelalderen i 840 og 990 (første skarvbeskrivelse i europæisk natur) samt 12-1500-tallet med den første europæiske ynglebeskrivelse i 1377, indikerede i hans optik, at der allerede var ”mellemskarv” i Europa før det tidspunkt Olburs argumenterede for, at den kunne være indført: ”The analyses show that there is no evidence for the introduction of birds from China. Instead, a medieval breeding record as well as regular appearance of the cormorant in religious and secular literature from the middle ages show that the bird was at least temporarily well-known in deeper inland regions of the german speaking area. The results raise strong doubts about the hypothesis of Phalacrocorax carbo sinensis being an introduced species, konkluderede han.
Denne konklusion er af mange (fejl)tolket som et bevis for, at mellemskarven skulle være en oprindeligt hjemmehørende fugl i Europa. Fakta er dog, at Beike (2014) ikke beviser noget, fordi det eneste han reelt kommer frem til, det er, at der ikke indtil videre er fundet dokumentation for en specifik transport af kinesisk mellemskarv til Europa, hvilket ikke er et bevis for, om det var mellem- eller storskarv, der var i Europa på det tidspunkt. De omtalte skriftlige kilder på europæiske skarv i den centraleuropæiske middelalder hverken dokumenterer eller sandsynliggør, at det skulle have været mellemskarv, eftersom 1) den blev først defineret som underart af Blumenbach i 1798 mange hundrede år efter og 2) beretninger om trærugende skarv er ikke et bevis for, at det rent faktisk var mellemskarv eftersom a) det ikke er en konservativ karakter i en evolutionær sammenhæng, b) der er eksempler på, at begge underarter kan bygge rede både på jord, klipper og i træer (Brown 1935, Berrow et al. 2024 m. fl.) – og c) En teori om gradvis spredning gennem Europa på grund af udkonkurrering sandsynliggør desuden, at det vi i dag ser som storskarvens nuværende primære ynglehabitat især på klipper, blot kan være resultatet af, at mellemskarven over tid har fortrængt storskarven nordvestover tilbage til det atlantiske område, hvor klipper rent lavpraktisk er en af de mest oplagte, sikre og almindelige potentielle redehabitater tæt på kysten.
Hvis man undlader Marus Beikes personlige tolkninger, er ingen af de faktuelle oplysninger i hans artikler dog i konflikt med en teori om, at mellemskarv af asiatisk herkomst kan have spredt sig op igennem Europa og gradvist fortrængt storskarven måske på en periode på over 500-1.500 år.

En voksen skarv æder i snit cirka et halvt kilo fisk om dagen – og er heldt vild med fx aborrer, som du ser her. Foto: Adobe Stock
Direkte eller diffuse spredningsteorier for mellemskarv fra Asien til Europa ikke i modstrid
De to skitserede modeller for menneskelig spredning af asiatiske mellemskarv til Europa – enten diffust eller direkte – er som sådan ikke i konflikt, og den ene udelukker ikke den anden; selv om domesticerede asiatiske mellemskarv med stor sandsynlighed kan have været kommet til Europa via handel gennem mange år over en bred front af transasiatiske handelsnetværk, udelukker det ikke, at der samtidig også kan have været specifikke direkte transporter bestilt eller foretaget af europæere, hvor vi pt bare ikke har fundet dokumentationen for det endnu. Det første nedskrevne eksempel, som illustrerer dette, er en hollandsk udsending, der allerede i 1655-57 i Kina forsøger at købe en fiskeskarv (Gudger 1926). Ejeren ville i det tilfælde ikke sælge, men det er oplagt, at interessen for “fiskeskarv” har været der fra Europæisk side, og at der sagtens kan være historiske dokumenter, som beviser direkte fragt af fiskeskarv fra Kina til Europa, som enten er gået tabt eller bare pt ikke blevet opdaget endnu.
I takt med øget digitalisering af gamle dokumenter kombineret med hastigt forbedrede AI-oversættelser og søgninger på originalkilder fra Eurasien og Østafrika, hvortil mange af de maritime silkevejsruter også førte, er det ikke usandsynligt, at der i fremtiden kan dukke meget mere ny information frem, som kan kaste nyt lys over eventuel handel med fiskeskarv fra øst mod vest.
Silkevejen – diffus human spredning af mellemskarv fra Asien til Europa
Da skarvfiskeri som nævnt var helt almindeligt blandt fattige i hele Kina og asiatiske mellemskarv samtidig blev handlet vidt og bredt i alle Kinas provinser plus sikkert også mange andre steder i Asien, må der have været enorme mængder af domesticerede mellemskarv i fjernøsten – måske allerede fra 500-1.000 tallet eller langt før. Med så mange tamskarv samt heraf følgende mulighed for undslupne fugle, har de vilde bestande af mellemskarv i Asien sikkert også båret på mange domesticerede gener for ekvilibristiske, men kunstigt fremavlede superfiskeegenskaber.
Diffus spredning i tid og rum, hvor handel mellem nærliggende landsbyer har spredt domesticerede fugle eller gener båret af vilde fugle længere og længere vestpå, er derfor i min optik yderst realistisk. Det kan have foregået få kilometer af gangen – enten til fods eller med skarverne på en lille båd. Undervejs og over årene kan løsslupne tamfugle have blandet sig med vilde fugle – og etableret småbestande. Fugle herfra har måske været fanget ind og trænet igen, ført videre – og så videre, hvilket kan være sket kontinuerligt over mange hundrede eller måske over tusinde år. Det kan være sket via et utal af parallelle spredningsveje, forbundet med nogle af de NS gående handelsruter, der førte frem til hovedsporene af Silkevejen i højlandet: Herfra kan de oplagt være transporteret med menneskelig hjælp det sidste stykke langs Silkevejens mange forgreninger – oplagt til eksempelvis oaser og vådområder i Tadsjikistan, Kirgisistan og grænseområdet mellem Xinjian og Kasakhstan, hvor fuglene kan have kommet sig med rigelige mængder vand og fisk. Det kan både være sket fra de nordlige ruter samt via den sydlige Silkevej gennem Gangesdalen og op over Karakorum Passet ned til det samme område.
Netop en gradvis spredning via mennesker over kortere distancer har måske rent lavpraktisk været nemmere end lange uafbrudte transporter, da det selvfølgelig har været lettere at holde skarverne i live og god form med føde og vand, jo flere pitstops, der har været undervejs. He (2009) nævner dog, at især unge skarvers kost ofte blev suppleres med tofu, der har været en kendt spisevare i Kina i cirka 2000 år. Tofu kan således oplagt have været brugt til at holde skarverne i live på længere transporter, hvor netop lav vægt, plads og holdbarhed har været altafgørende. Det kan nemlig tørres, holde sig i helt op til et år – og derefter kvældes i vand, inden det spises. Netop disse egenskaber for tofuen kan oplagt have gjort det lettere at fragte skarv længere stræk gennem tørre områder, fordi man selv ved den mindste kilde, bæk eller oase uden fisk, vil have haft muligheden for at supplere foder eller fodre fuglene med kvældet lufttørret tofu, så de overlevede transporten.
Fra de centralasiatiske oaser og vådområder kan mellemskarverne enten være ført og handlet videre – og/eller have dannet vilde bestande fra undslupne fugle, der gradvis har spredt sig vestover gennem vådområdekorridorer kombineret med kortere flyvninger over tørre områder for at komme videre vestover de vestasiatiske stepper til nye attraktive levesteder. På den måde kan de asiatiske mellemskarv have været nået Det Kaspiske Hav – samt det, der meget vel kan have været østkanten den oprindelige storskarvs udbredelsesområde – repræsenteret ved subfossile skarvfund i Aserbajdsjan (Tyrberg 1998). En anden oplagt vej vestpå er landtransport kombineret med den maritime silkevejs mange mindre etaper der via Indiens og Mellemøstens havne gradvist kan have ført asiatiske mellemskarv til fx Det Røde Hav og Egypten – hvor den har ramt den oprindeligt sydøstlige udbredelse for storskarven, hvilket som nævnt er underbygget af Pleistocæne fund fra Egypten og Holocæne fund fra Saudi Arabien.

Der er i dag cirka 30.000 ynglende skarvpar i Danmark.
Mellemskarven indvandrer fra øst og erobrer Europa
Hvis teorien holder, og den asiatiske mellemskarv gradvist skulle have erobret Europa fra sydøst mod vest og nord som enten som ynglefugl og/eller resident, så må den asiatiske mellemskarv have haft en helt særlig trumf. For hvordan kunne den eventuelt være i stand til at udkonkurrere den noget større storskarv på sin vej vestover? Ofte er det jo sådan, at større dyr af samme type er dominante overfor mindre dyr af samme type. Svaret kunne oplagt ligge i, at man i måske over 2.000 år på kunstig vis har selekteret kraftigt for at fremavle de mest effektivt fiskende mellemskarv. Studier har da også vist, at en forøget fourageringseffektivt ikke overraskende giver bedre ynglesucces (Daunt et al. 2007) – og dermed oplagt også bedre mulighed for at ekspandere sin udbredelse ved at påføre storskarven hård interspecifik konkurrence.
Domesticerede mellemskarv i Asien var tvunget og dresseret til fange mange flere fisk end vilde fugle, fordi de først skulle fange konsumfisk til deres herre – og derefter byttefisk til sig selv og deres unger. He og Grémillet (2009) refererer baseret på omfattende kinesiske litteratur- og feltstudier, at skarven ofte skulle fange omkring otte fisk, før de selv fik én – og det var typisk en af de mindre. De kinesiske fiskeskarv har altså rent jagtmæssigt skulle præstere betydeligt mere end vilde skarv, som ”bare” skulle fange fisk til sig selv og deres unger. Præcis som med alle andre dyr, der er domesticeret af mennesket gennem årtusinder, har man selvfølgelig valgt de bedste mellemskarv til avl, hvorved man i hundredevis af generationer målrettet har selekteret for at give de asiatiske mellemskarv sine næsten overnaturligt effektive fiskeevner: Det kan oplagt have givet den de egenskaber, som efterfølgende kan have gjort dem i stand til at udkonkurrere storskarven.
Østersøen – da Storskarven forsvandt og mellemskarven overtog
Det udbredelsesmønster vi p.t. ser, hvor mellemskarven har rykket længere og længere vest og nordpå gennem Europa, stemmer godt overens med teorien om, at den asiatiske mellemskarv fra øst gradvist kan have erstattet den oprindelige europæiske storskarv, hvilket er i tråd med tidligere studier (Stevart 2002 samt Ericson og Carrasquilla 1997).
Sidstnævnte har på basis af store morfometriske studier af skarvknogler fra Østersøområdet kunne konstatere, at der i perioden op til 13-1500 tallet samt måske senere endnu senere – udelukkende var storskarv i Østersøområdet med det sidste dokumenterede fund vist på et maleri fra 1695 (Olburs 2008). Ericson og Carrasquilla kæder storskarvens uddøen sammen med, at saltholdigheden i Litorinahavet faldt: ”Maybe the salinity sank below some treshold value after 1500AD causing the P. c. carbo to cease breeding in the baltic. Simultaneously, the environment slowly transformed into that prefered by P. c. sinensis, which seems to have colonized the region soon after.” Det passer dog ikke godt sammen med palæosalinitets-modeller og proxyværdier for saltholdigheden i Østersøen i samme epoke (Westman et al. 1999). De viser nemlig, at saltholdigheden har været den samme i Østersøen siden 500-tallet, og selv da den toppede i Østersøen cirka 5.000-6.000 BP, har den ikke har været for høj til en mellemskarv, hvis man fx kigger på, hvor den normalt yngler og fouragerer nu – både i Atlanten og ved oceanisk saltholdighed i Kina. Så mellemskarvens eventuelle konkurrencefordel over for storskarven er næppe relateret til lavere saltholdighed, da man i givet fald ville forvente stigende procentdel mellemskarv i knoglefundene op igennem Subboreal (5.000-2.500 BP) og Subatlantikum (2.500 BP) op til mellemskarven overtager dominansen som ynglefugl i Østersøområdet, hvilket jo ikke er tilfældet. Hvis saltfaktoren vitterlig var en afgørende faktor for de to skarvunderarter, forekommer det også mærkeligt, at storskarven tilsyneladende den dag i dag har det fint med at overvintre og fouragere i selvsamme saltholdighed, som de forlod i tidligst 13-1500-tallet – måske først helt hen i 17-1800 tallet. Det kunne tyde på, at overgangen fra oprindelig storskarv i Østersøområdet til gradvist øget dominans af mellemskarv fra omkring 17-1800-tallet på gydepladserne, i virkeligheden skyldes andre faktorer – eksempelvis, at det ”tilfældigvis” er netop dette tidspunkt, hvor mellemskarven i sin gradvise erobring nordpå gennem det europæiske kontinent er kommet frem til Østersøen.
Mellemskarven blev første gang registreret i Danmark, Sverige, England, Finland, Baltikum og Norge fra 1800-tallet og frem til slutningen af 1900-tallet. At de første underartsbestemte eksemplarer af mellemskarv netop er fra disse år, siger ikke nødvendigvis så meget om det helt præcise ankomstår, men kan meget vel været et artefakt af, at mellemskarven først blev defineret som underart i 1798 – med efterfølgende stigende awareness om, hvorvidt det var den ene eller anden underart af skarv, der blev iagttaget. Selv med de bedste kikkerter nu til dags og med et trænet øje kan de to underarter været meget svære at kende fra hinanden.

Selv for trænede ornithologer er det svært at kende forskel på mellem og storskarv – og det er heller ikke muligt at kende forskel på enkelte knoglefund, fordi der er så stor forskel i størrelsen af han og hun – med et stort overlap imellem de to arter. Kun ved større morfometiske studier med et stort statistisk grundlag kan man udtale sig om hvilken art, der er tale om i et givent område.
Allopatrisk underartsadskillelse af skarv mere sandsynligt end sympatrisk
I dag lever de to underarter storskarv og mellemskarv sympatrisk i Europa – dvs i samme område uden en impassabel naturlig geografisk spredningsbarriere. Antager man, at mellemskarven vitterlig var oprindelig i Europa og havde været her i fx hundredetusindvis af år, så ville vi også skulle kunne forklare opretholdensen af underartsadskillelsen over tid ud fra noget – eksempelvis præferencer for forskellige habitater.
Hvis salt/kyst vs fersk inlandshabitat var præmissen for en underartsadskillelse af mellem- og storskarven, ville vi også forvente: 1) Dannelse af to lignende sikre og lige så forskellige underarter i Kina. 2) Hvis stor- og mellemskarv vitterlig havde sameksisteret naturligt i Europa i fx hundredetusinder af år – stabilt opretholdt som underarter over tid og kun adskilt af nichedelingen mellem salt og ferskvandspræference – så ville vi forvente, at arterne ikke hybridiserede, men derimod bevægede sig væk fra hinanden genetisk. Begge dele er ikke tilfældet idet: 1) Der er kun én sikker underart i Kina – nemlig mellemskarven, der både findes inde i landet i ferskvand og langs de østasiatiske kyster, hvor den fouragerer i områder med en saltholdighed op til 30-40 promille (Huang 2025). ”Underarten” Japanese great cormorant – Phalacrocorax carbo hanadae, som er nærmest identisk med mellemskarven, er normalt slået sammen med mellemskarv som sinensis/hanedae (EBird), eftersom der som antydet er uklarhed om, hvorvidt det rent faktisk er en underart. 2) Nye genetiske studier viser introgressiv hybridisering (Winney et al. 2000 og Grøndahl og Johnsen 2024) mellem stor- og mellemskarv i Norge og Storbritannien, hvilket ikke bidrager til at opretholde underarterne, men snarere at udvande dem over tid. Grøhndahl og Johnsen (2024) konkluderer således: ”Our results suggests that geneflow is more common from sinensis into carbo than vice-versa…”
Det øjebliksbillede, som vi ser i 2026, med hovedparten af mellemskarverne på fastlandet samt ved ferske- og brakvandsområder samt majoriteten af storskarverne langs Atlanterhavskysterne, kan altså blot være et artefakt af, at den østlige mellemskarv ved menneskets hjælp har ekspanderet vestover samt V og NV på gennem Europa via interspecifik konkurrence.
Mellemskarven – ikke-hjemmehørende og invasiv i Europa?
Med afsæt i den nuværende viden om skarven tyder alt i min optik p.t. på, at der er langt større videnskabeligt baseret evidens for, at den europæiske mellemskarv er ikke-hjemmehørende og oplagt invasiv – end der er for, at den skulle være oprindeligt hjemmehørende.
En endelig afklaring af mellemskarvens spredningsmønster og status som hjemmehørende eller ikke-hjemmehørende i Europa kræver et omfattende genetisk studie – optimalt set med aDNA på subfossile fund af skarv i hele Eurasien samt DNA-tests på nutidige skarv fra hele udbredelsesområdet. Men – det er næppe simpelt, for hvor eventuel målrettet import af asiatiske mellemskarv, som foreslået af Olburs (2008), sikkert vil vise en genetisk flaskehals, så vil en mere diffus human-medieret spredning over en bred front i tid og rum sandsynligvis give et langt mere udvandet genetisk billede.
Indtil mellemskarvens spredningshistorik er endeligt afklaret med DNA analyser, kan der forvaltningsmæssigt argumenteres for et forsigtighedsprincip, hvor konsekvensen p.t. bør være en kraftig regulering af mellemskarven i hele Europa, så den 1) kommer ned på et bestandsniveau, der hverken sætter den sandsynligvis oprindelige storskarv i fare for irreversibel genestisk forurening/udvanding og 2) ikke påvirker eksisterende hjemmehørende og især sårbare fiskearter negativt. Dette – samt spørgsmålet om, hvorvidt EU’s Fugledirektiv bør revideres, og hvorvidt skarven rent forvaltningsmæssigt bør katerogiseres som invasiv – er omdrejningspunktet for den tredje og sidste artikel i serien, der kommer snart på fiskogfri.dk.
LITTERATUR, DER BELYSER MELLEMSKARVEN SPREDNINGSHISTORIK:
Beike, M: “The history of Cormorant fishing in Europe”, Die Vogelvelt 133: 1-21 (digital engelsk version), 2012.
Beike, M: “Phalacrocorax carbo sinensis in Europe – indigenous or introduced?” Ornis Fennica 91: 48-56. 2014.
Berrow et al: ”Cormorants Phalacrocorax carbo breeding in Special Protection Areas in the Shannon Estuary and adjacent waters”, Irish Birds 47: 1–8, 2025.
Bliedtner, M. et al: “Holocene Temperature Variations in Semi-Arid Central Mongolia—A Chronological and Sedimentological Perspective From a 7400-year Lake Sediment Record From the Khangai Mountains”, Sec. Quaternary Science, Geomorphology and Paleoenvironment, Vol. 10, 2022.
Boev, Z.N: “The Holocene avifauna of Bulgaria (A review of the orni-archeological studies)”, Historia naturalis bulgarica, 6, 59-81, 1996.
Boev, Z.N: “Fossil birds in the National Museum of Natural History, Sofia: composition, development and scientific value. Zool. Med. Leiden 79-3 (4), 35-44, 30-ix. 2005.
Bregnballe, T og Gregersen, J: ” Udviklingen i ynglebestanden af Skarv Phalacrocorax carbo sinensis i Danmark 1938-1994#, Dansk Om. Foren. Tidsskr. 89: 119-134, 1995.
Browne, T: “An account of birds found in Norfolk. In Sir Thomas Browne´s works, Vol. 4 (ed. Wilkin, S) 311-323, Pickering, London.
Bulleid, A., & Gray, S. G: “The Glastonbury Lake Village”. Glastonbury Antiq. Soc. 2: 632-637, 1911-17
Daunt et al: “Older and wiser: improvements in breeding success are linked to better foraging performance in European shags”, Functional Ecology, vol. 21,3. 2007.
Ericson, G, P og Carrasquilla, H: ”Subspecific identity of prehistoric Baltic cormorants Phalacrocorax carbo”, Ardea 85: 1-7. 1997
Galimova, D, N et al: “Bird Remains from the 5th – 17th Century AD Archaeological Sites in the Middle Volga Region of Russis”, International Journal of Osteoarchaeology, Int. J. Osteoarchaeol., 2024.
Grøndahl, F, A og Johnsen, A: ”Combining biometrics and genetics to distinguish two subspecies of the Great Cormorant Phalacrocorax carbo carbo and P. c. sinensis at an inland lake in southeast Norway. Ornis Norvegica 47: 25-40, 2024.
He, L og Grémillet, D: ”A review of the current knowledge and status of tame Great Cormorants Phalacrocorax carbo in China”, BirdingASIA, 12, 103-106, 2009.
Holt et al: ”An Update of Wallace’s Zoogeographic Regions of the World”, Science 339, p. 76. 2013.
Huang, S et al: “Long-term monitoring data inform conservation strategies for waterbirds in the abandoned tropical salt pans of Budai, southwestern Taiwan”, Global Ecology and Conservation, 62:e03736, 2025.
Liang, Q. et al: ”Subsistence strategies in the Late Neolithic and Bronze Age in Nenjiang River Basin: A zooarchaeological and stable isotope analysis of faunal remains at Honghe site, Northeast China. International Journal of Osteoarchaeology, 1–14. 2023.
Monchot, H:” Arabian Animal Remains from the Bronze Age to the Historical Period: a State of Research”, In Athirat: Journal of Ancient Atabia 2 (2026) 165–196, 2026
Nomokonova, T:” A 9,000 Year History of Seal Hunting on Lake Baikal, Siberia: The Zooarchaeologyof Sagan-Zaba II, 2015.
Olburs, C: “The chinese cormorant Phalacrocorax carbo sinensis Blumenbach 1798 – An attempt to understand a complex biological question”, 2008.
Stevart, J, R: “Sea-birds from coastal and non-coastal, archaeological and“natural” Pleistocene deposits or not all unexpected depositionis of human origin”, Acta zoologica cracoviensia, 45(special issue): 167-178, Kraków, 2002.
Tyrberg, T. ”Pleistocene birds of Palearctic – a catalouge”, 1998.
Wang et al, “Ancient DNA insights into Neolithic bone-tool use on the Tibetan Plateau, Journal of Archeologival Science , article 106183, Vol. 177, 2025.
Westman et al: “Salinity change in the Baltic Sea during the last 8,500 years: evidence, causes and models”, Oceanus Havsundersökningar, Göteborg, 1999.
Winney, B, J er al: “The subspecific origin of the inland breeding colonies of the cormorant Phalacrocorax carbo in Britain”, Heredity 86, 45-52, 2001.
Zeder, M & Spitzer, M: ”New insights into broad spectrum communities of the Early Holocene Near East: The birds of Hallan Çemi“,Quaternary Science Reviews 151(2):140-159, 2016.
NOTER
– Ericson og Carrasquilla (1997) nævner tre ”sinensis” knogler fra Bulgarien (3.000 BP), der er anvendt til at belyse, hvorvidt mellemskarven kan have ændret størrelse over tid. Disse dokumenterer dog ikke oprindelig mellemskarv i Europa, fordi sikker bedømmelse kan kun ske ved større morfometriske studier som afklaret i del 1, hvilket sandsynligvis også er årsagen til, at man i ingen bulgarske subfossile samlinger finder Phalacrocorax carbo knogler bestemt på underartsniveau (Boev 1996 og 2005).
– Beike (2014) argumenterer for, at et skarvfund inde i Europa (Brehm, 1824) senere identificeret af Claud B. Ticehurst (1923) var identisk med Blumenbachs typeeksemplar af sinesis. Diskussionen om hvorfor mellemskarven har fået underartsnavnet sinensis, der betyder ”den kinesiske skarv”, er i min optik baseret på anekdotisk tvetydighed, der er svær at konkludere noget ud fra. Oprindelsen til navnet sinensis er reelt uden betydning – idet der er så god evidens for, at den kan have spredt sig ved menneskelig hjælp til Europa på flere forskellige måder – uanset hvad dens latinske navn er.
sep 5, 2026 | Artikler, Guide til fiskepladser, HAVØRREDFISKERI, Kystfiskeri, Kystpladser til havørred, Nyheder
Smukke kyster, varierede fiskepladser, altid mulighed for læ, og så det vigtigste: Mange fisk! Øen Mors i Limfjorden byder på det hele og mere til. Her får du lokale tips til pladserne, fiskeriet og grejet.
AF KARSTEN BECH
SOLEN BEGYNDER så småt at smyge sig op på himlen. Ikke at jeg kan se den, jeg er nemlig ved at rigge grejet til, og står med den imponerende Hanklit i ryggen. Med sine over 60 meter, tårner den høje lerklint sig op over mig, og solen er kun et gyldent skær længere ude på vandet. Med grejet klar sætter jeg mig på en af de store sten, så jeg kan spejde efter fisk. Der går kun små fem minutter før en ring viser at der er fisk på pladsen. Jeg kaster nogle gange uden held, og bestemmer mig for at skifte agn. En bestemt sætning runger i mit hoved. – Jo jeg har godt nok andre blink, men den hvide stripper, den vil de altid have, så jeg bruger ikke andet. Sætningen stammer fra en af de lokale, jeg snakkede med en kold vinterdag, hvor det eneste der bed var kulden. Jeg monterer den lille hvide stripper, og i første kast følger en fisk med ind, og vender lige under stangtoppen. Et kort kast og et spinstop senere er dagens første fisk er på. En flot blank målsfisk går fri af vandet og kæmper det bedste den har lært, inden jeg afkroger den og sætter den tilbage igen. I de næste par kast er der enten følgere, eller små hug, men det lykkesmig kun at kroge en enkelt fisk. Igen en smuk blankfisk omkring målet, der giver en god fight. Denne fisk er tromletyk, og kommer med hjem til middagsbordet.
For nogle år tilbage hørte jeg om den smukke ø Mors. Jeg vidste selvfølgelig allerede, at øen lede længe efter. At der så også fanges fisk – mange fisk – ja det gør jo ikke det hele ringere. To lystfiskere som virkelig fanger fisk på Mors, fortæller her lidt om deres fiskeri, og giver nogle gode råd til Mors’s havørreder.
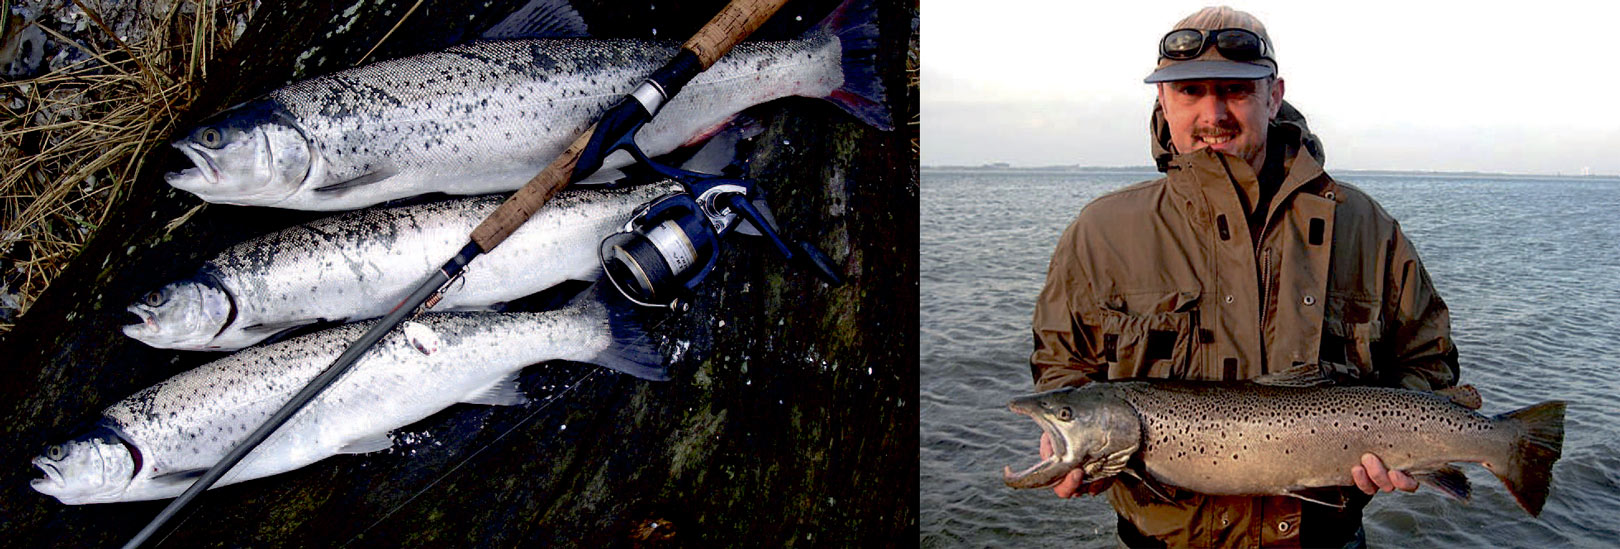
1) Her ses tre fine fisk taget på Mors i marts måned på Mepps spinner.2) Hans Jørgen Nørgaard viser, at der også findes store fisk på Mors, selvom øen mere er kendt for mængden af fisk frem for størrelsen. Her står han med en
farvet efterårsørred på 4,6 kilo. Hans oplever dog, at gennemsnitsstørrelsen på fiskene faktisk er stigende.
Efter havørred på Mors med Susanne Worm
Susanne Worm har fisket efter havørreder på Mors i snart ni år. Forventningens glæde, det første kig ud over vandet, og at følge med i naturens gang samt alt hvad der rør sig i den, er det der driver hendes fiskeri. Susanne er ofte at finde i fangstjournalen på Morsø Lystfiskerforenings hjemmeside (www.morslf.dk) og hun er desuden medredaktør på kystfiskeren. net (www.kystfiskeren.net) hvor hun deler ud af sin viden om teknikker og fluemønstrer.
– Mit fiskeri i Limfjorden foregår hovedsagelig med en ni fods Berkeley Titanium SSGS spinnestang med en kastevægt fra 7-28 gram starter Susanne. – Hjulet er fra Daiwa og er modellen Caldia For enden af linen sidder der 80% af tiden et flydende hvidt bombardaflåd, der vægtmæssig spænder fra 20-30 gram. Hovedlinen er pt. 0,15mm Fireline Crystal og forfanget der er af flourocarbon, er max. 20 centimter længere end stangen. Der er også tit to fluer på forfanget. Hvis der er forskel, sidder den tungeste nederst og ophængerfluen svarende til cirka midt på stangen.
Fiskeriet med bombardaflåd er en effektiv måde at fange fisk på. Man kan kaste langt – selv omdet jo tit ikke er nødvendigt – men muligheden er der. Man kan præsentere fluen både hurtigt, langsomt og – i forhold til blink – holde den over en potentiel fisk med et spinstop. I vinterperioden fisker jeg oftest med farverige fluer i kradse farver som pink, orange og lilla.
Mine favoritter her er så absolut Pink Glimmerreje og en egen kreation kaldet Sunrise. Den er lidt tungere og fisker lidt dybere. Fluen kan ved forskellig indspinning/indtagning få en jiggende gang i vandet, og det virker måske ekstra lokkende. Engang fangede jeg en havørred på netop denne flue, hvis hals var proppet med børsteorm, og i maven havde den 51 kutlinger. Et godt trick er, at fiske med to fluer på forfanget gerne en farverig flue kombineret med en mere neutral.
I marts er det mere de naturlige farver, der får overtaget. Sidste år var mine favoritter en rejeimitation kaldet Den Gule Enke og en fiskeimitation døbt Banditten XL. Begge fluer er meget levende i vandet, på grund af de store hackler jeg ofte bruger. Der er også lidt kontrast og en anelse glimmer. Alt sammen noget der er med til at fange opmærksomheden fra en fisk. Krogstørrelsen er oftest 6-8. Disse to fluer gav mig i øvrigt de to største efterårs havørreder jeg endnu har fået i Limfjorden på henholdsvis 3,5 og 3,6 kilo. Pink Glimmerreje gav mig til gengæld en af de smukkeste fisk nogensinde i februar sidste år. Blot 60 cm, og 2,7 kilo og sølvblank. Fisk med det du tror på, og tro på det du fisker med. Det er halvdelen af turen, slutter Susanne.
Kinetic wobleren Salty går under navnet Det Hemmelige Våben på Mors og mange lokale sværger til dem. Den hvide til vinter og forår og den naturlige til sommer og efterår.
Kutlinge og rejeimitationer er populære på Mors og om vinteren må de gerne have et indslag af en skrap farve.
Kystfluefiskeri efter havørred på Mors
Hans Jørgen Nørgaard er 43 år gammel, bor på Mors, og har fisket lige fra barnsben. I 1995 fik han sin første fluestang, og siden har han næsten ikke dyrket andet end fluefiskeri. De lavvandede kyster omkring Mors, og det faktum, at der altid er mulighed for at finde et sted med læ er skyld i dette. At han så i tilgift er blevet bidt af en gal fluebinder, og indrømmer, at der til tider bliver brugt mere tid på at binde fluer end at fiske, ja det er vel noget de fleste med hang til fluefiskeri kender til.
Fluestangen er en klasse 5 stang med et forholdsvis kort skydehovede. Til de dage, hvor blæsten driller, har han en reservestang klasse 7, men det er hovedsageligt den lette stang, der fiskes med, da den er sjov at fange fisk med. Hovedparten af de fisk, der fanges omkring Mors, er mindre fisk omkring målet. De sidste par år er der dog dukket en del større eksemplarer op. Noget som Hans Jørgen tilskriver det faktum, at de fisk der udsættes på Mors stammer fra Karup Å, hvis ørredstamme jo netop er kendt for bestå af store fisk.
– For det meste sidder der en Rejeflue eller en Polar Magnus i str. 6 eller 8 for enden af forfanget, fortæller Hans Jørgen. – Men er der dage hvor fiskene ikke rigtig vil noget kan jeg godt finde på at sætte en Juletræsflue på. Den sætter som regel gang i fiskene. Hans Jørgen mener i øvrigt, at det ikke er fluerne, der fanger fiskene, men fiskeren. Et godt synspunkt, når man til tider hører de mange diskussioner om små detaljer på fluerne.
Meget fiskeri på Mors foregår nær land. Hans Jørgen vader normalt en kastelængde ud, og fisker så både ud mod det dybe, men også ind mod stranden. Især er der en overgang ca. en meter fra land, hvor vanddybden skifter fra få centimeters dybde til omkring 25-30 centimeter. Her trækker fiskene ofte rundt på jagt efter føde. Ellers foregår fiskeriet gerne over muslingerev og omkring ålegræsbanker.
Det mest spændende fiskeri foregår, når der fiskes i områder med sandbund og spredte ålegræsbanker. Man lægger sin flue ud over ålegræsset, og når den så nærmer sig overgangen mellem ålegræs og sand, er det med at holde godt fast. Hugget kommer som et lyn fra en klar himmel. Havørrederne skjuler sig nemlig ofte ved den mørke tang, så de kan ligge og lure ud over sandbunden, hvor byttedyrene er nemme at se Hans Jørgen har et godt tip til dem, der selv binder deres kystfluer.
Mange af de fluer der bruges på Mors, har lange hackler, og for at undgå at fluerne bliver for kompakte, strippes de på den ene side. Kort sagt alle fibrene fjernes. På den måde får du en meget levende kystflue. Hans Jørgen bruger de billige kinesiske hanenakker. Bagerst på dem sidder der let 20-30 fjer, som er lange nok til at give denne speyeffekt.
Der fiskes også en del med blink og spinnere på Mors. Det, der adskiller fiskeriet her fra alle andre steder, er at grejet og blinkene er noget lettere. Blinkene er sjældent over 12 gram. Stripper, Imitator og Trumf er nogle af de lokale storfangere. Desuden fiskes der meget med en Salty wobler. Denne wobler går højt i vandet, og kan derfor fiskes i forholdsvis lavt tempo uden at gå i bunden. Et lokalt tip er at fiske med Mepps spinnere størrelse 2 eller 3 i efteråret. De kaster ikke så langt, men det gør sjældent noget da fiskene ofte går tæt på land.
Hanklit er en populær vinterplads, men der er nu gode muligheder året rundt.
De bedste kystpladser til havørred på Mors
Gode fiskepladser er der nok af. Der er dog nogle områder som er mere kendte end andre.
Det nordlige Mors byder på mange spændende og smukke fiskepladser. Ved Skranderup er det især området omkring Den Røde Galt, en stor sten, der ligger ude i vandet, som er et hot spot. Men området byder også på et langt vadestræk med en meget varieret bund. Det ermuligt at parkere lige ved stranden.
Sø Bugt ligner ved første øjekast ikke en god fiskeplads, men lad dig ikke snyde af det lave vand og sandbunden. Bugten er kendt for godt fiskeri efterår og forår. Læg især mærke til mørke områder med ålegræs. Ørrederne er ofte at finde i nærheden af disse.
Skibsted Strand og Hanklit er som sådan to forskellige pladser, men i bund og grund er det et langt kyststræk, som holder ørreder året rundt. Især Hanklit er en utrolig smuk fiskeplads, som har sit navn fra den 66 meter høje Hanklit. Bunden er meget varieret med både store sten og områder med ålegræs. Det er muligt at parkere ved stranden flere steder.
Dragstrup Vig er en af Limfjordens kendte fiskepladser. Og ikke uden grund. Især efterårs- og forårsperioden er topsæson, og der landes rigtig mange fisk. Pladsen er meget stor og varieret, da det er muligt at fiske helt fra Revlkær Hage i nord til Mågerodde i syd. Fiskene går ofte tæt på land i dette område, så sørg for at få fisket området godt af, inden du vader ud. Der er flere parkeringsmuligheder ved pladsen.
Sønderby byder på to forskellige typer pladser. Vest fra Sønderby foregår fiskeriet især omkring Hestør Odde. Pladserne her er lavvandede med varieret bund, og især kendt for et godt fluefiskeri. Øst for Sønderby foregår fiskeriet i Salling Sund, som er et smalt strømfuldt stræde med dybt vand. Pladserne her er typiske spinnegrejspladser, hvor det kan være nødvendigt med lidt tungere udrustning. Det er muligt at parkere ved stranden på Hestør Odde, mens det øst for Sundby er muligt at parkere ved vejen, som løber tæt ved stranden.
Buksør Odde er en af Limfjordens toppladser. Den lange odde går et godt stykke ud i Limfjorden og byder på godt fiskeri året rundt. Da det er muligt at fiske på begge sider af odden, kan man næsten altid finde læ hvilket især fluefiskeren kan drage nytte af.
Fra Ejerslev Lyng og helt op til Hulhøj byder kysten på godt fiskeri. Bunden er meget varieret med både sand, muslinger, sten og store samlinger af ålegræs. Det er muligt at parkere flere steder langs kysten. Der er mange fredningsbælter på Mors. Gå ind på www.morslf.dk, hvor du kan få overblik over fredninger og fredningsbælter.
Mange adgangsveje til kysten på Mors er private. Respekter dette, og spørg hellere om lov en gang for meget frem for en gang for lidt.
Artiklen belv oprindeligt publiceret i Fisk & Fri 6/2009