sep 11, 2026 | Artikler, Miljø og debat
Subfossil cormorant remains indicate that prehistoric populations in Europe and Asia were separated by a massive natural dispersal barrier in the Central Asian highlands, dividing the birds into two distinct populations. All evidence suggests that the westward spread of the continental great cormorant from Asia to Europe could only have occurred with human assistance, providing strong evidence that the European subspecies sinensis ssp. is not native to the Danish and European fauna.
BY JENS BURSELL, BIOLOGIST. PHOTOS: LARS LAURSEN & ADOBE STOCK
As established in part 1, there is neither subfossil nor genetic evidence demonstrating that the sinensis subspecies of the great cormorant was originally part of the Danish fauna. And since the relatively few bone finds in Denmark cannot reliably distinguish between the carbo and sinensis subspecies, the same naturally applies to the rest of Europe, where there is currently neither subfossil nor genetic evidence showing that sinensis was originally part of the native fauna.
Most previous studies of the history of European cormorants have taken a relatively narrow approach, without considering their history from a broader temporal and geographical perspective. To clarify the origin and arrival of sinensis in Europe, it therefore makes sense to look more closely at subfossil remains, zoogeographical zones and natural dispersal barriers across prehistoric Eurasia throughout the Holocene and Pleistocene. Combined with an interdisciplinary evolutionary perspective, this may provide a new, evidence-based interpretation of the dispersal history of the cormorant — Phalacrocorax carbo — and its two subspecies, the Great Cormorant (carbo ssp.) and the continental cormorant (sinensis ssp.).

The diffuse westward spread of the continental great cormorant from Asia to Europe—facilitated by humans, for instance via the Silk Road—is one of several possible explanations for how the previously geographically isolated Phalacrocorax carbo sinensis may have reached Europe, where it has since spread widely. (AI-GENERATED – Jesper Fohrmann)
The gradual human-assisted and “natural” westward spread of sinensis from Asia to Europe
My interpretation of what best explains the present-day global distribution of the two cormorant subspecies is that P. c. carbo is the original European subspecies, having been geographically separated from P. c. sinensis in East Asia by the vast Central Asian dispersal barrier. From there, a gradual and diffuse westward spread of sinensis, assisted by humans, may have taken place from East Asia across the Central Asian dispersal barrier and into Eastern and Southern Europe over a period perhaps spanning 500–1.000 years. This could have occurred along the extensive network of terrestrial and maritime trade routes associated with the Silk Road, potentially combined with more direct transportation or deliberate importation (Olburs 2008).
From there, it is plausible that both (a) further “natural” and (b) human-assisted dispersal of P. c. sinensis took place westward, northwestward and northeastward through Europe. In this scenario, (a) P. c. sinensis gradually outcompeted P. c. carbo, while (b) possible direct introductions from Asia and/or re-domestication of “wild-immigrating” cormorants of Asian origin may have further accelerated the northward spread of P. c. sinensis. The latter could readily have occurred after interest in cormorant fishing intensified in Venice from the beginning of the 16th century (Olburs 2008; Beike 2013, 2014), and was later reinforced by an interest in cormorant fishing in Renaissance France, the Netherlands and England (Olburs 2008; Beike 2013, 2014).
This new theory of a gradual introduction of Asian sinensis into Europe across a broad geographical and temporal front — combined with the subsequent “natural spread” of its Asian genes throughout Europe — does not conflict with the factual information and specific findings of previous studies. Rather, it helps support and explain a number of the questions left unanswered by earlier research and reviews of the literature.
Here is the background to my interpretation:
7,500 km between European and Asian great cormorants in the Pleistocene
The period preceding 11,700 years ago is known as the Pleistocene. During this period, great cormorant remains have been recorded in most European countries, including England, Ireland, Germany, the Czech Republic, Italy, Switzerland and Spain, as well as in Israel, Egypt and, furthest east, Azerbaijan. The two closest Pleistocene finds to Denmark were in Bavaria and Norfolk — both approximately 800 kilometres away (Tyrberg 1998).
Across Central and East Asia, there is only one location where great cormorant remains have been found from this period: Japan (Tyrberg 1998). What is striking here is the abundance of finds in Europe, the complete absence of finds across Western and Central Asia, and then the two finds in Japan.
Already at this point, it seems reasonable to consider the possibility that the western European/Middle Eastern subspecies may have been ancestral to the atlantic great cormorant (Phalacrocorax carbo carbo), while the eastern subspecies may have been ancestral to the continental great cormorant (Phalacrocorax carbo sinensis). The two may originally have been separated allopatrically by a natural dispersal barrier approximately 5,000–6,000 kilometres wide, stretching across the deserts and mountain ranges of Iran, the mountains of northern Pakistan, and the Hindu Kush, Karakoram, Pamir, Alai and Tien Shan ranges, with the Himalayas, the Tibetan Plateau, the Taklamakan and Gobi Deserts, and the Mongolian highlands further to the east.
In addition, large parts of the region extending from the eastern shores of the Caspian Sea to the western edge of the Central Asian highlands consisted of dry steppes and deserts, most of which would have provided unsuitable cormorant habitat. This would have further impeded any east–west dispersal of the two subspecies (see map below).
The absence of Pleistocene great cormorant remains from this belt stretching across Asia from Japan to Azerbaijan cannot be attributed to a lack of relevant archaeological excavations. In fact, 37 excavations involving analyses of subfossil bird bones have been carried out in Iran, Iraq, Kazakhstan, Kyrgyzstan, Uzbekistan, Mongolia, China and the Asian part of Russia (Tyrberg 1998) — without a single great cormorant being identified.

When cormorants migrate, they fly an average of approximately 60–100 kilometers a day before settling in a wetland area to rest and forage on freshly caught fish. Although the great cormorant is capable of flying several hundred kilometers in a single stretch, it is therefore unlikely that the eastern subspecies – Phalacrocorax carbo sinensis – spread naturally westward across the vast, arid, and high-altitude Central Asian barrier separating the two original ranges: Europe/the Middle East in the west and the geographically isolated population in the Far East.
European and Asian Cormorants in the Holocene — 11,700 Years Ago to the Present
The Holocene also provides numerous cormorant finds from Europe (Bregnballe and Gregersen 1995; Ericson and Carrasquilla 1997; Bullied and Grey 1911–17; Stewart 2002).
When searching for Asian subfossil cormorant remains from the Holocene, there are finds from southeastern Turkey, in the Upper Tigris region, dating to 11,700–10,500 BP (Zeder & Spitzer 2016), as well as finds from Saudi Arabia dating to approximately 5,000 BP (Monchot 2026), which could plausibly belong to the western great cormorant. Northeast of this area lie the Persian Gulf and the deserts of Iran and Afghanistan, forming a massive dispersal barrier extending northeastward toward the Central Asian plateau.
There are also great cormorant subfossils dating to 9,020–8,650 BP from Lake Baikal in Siberia (Nomokonova et al. 2015). However, because this site lies north of the species’ present-day northernmost distribution — probably as a result of the Holocene Thermal Maximum, which occurred approximately 10,300–7,900 BP — this find is less relevant to the question of possible human-assisted westward dispersal of the continental cormorant. It predates by a considerable margin the period when cormorants were domesticated, as discussed below.
The coldest period on the northern Central Asian plateau occurred between approximately 4.000 and 200 BP (Bliedtner 2022). This would presumably have made natural westward dispersal by Chinese continental great cormorants or fishing cormorants particularly difficult during the several thousand years in which cormorant domestication may have emerged and subsequently developed — coinciding almost exactly with the period when trade along the Silk Road reached its peak.
There are also subfossil great cormorant remains from Asia dating to approximately 4.000 BP that have been verified through ancient DNA (aDNA) analysis from the Tibetan Plateau, 300 kilometres west of Lhasa (Wang et al. 2025). These could plausibly represent the eastern continental cormorant population. The Lhasa River eventually flows into the Brahmaputra, which joins the Ganges before emptying into the Bay of Bengal, suggesting that continental cormorants may also have been present in northern India at the time. In addition, cormorant remains dating to 7,000–4,500 BP have been found in the lowlands of eastern China (Liang et al. 2023).
Taken together, this provides further support for the possibility that, well into the Holocene, there were still two geographically distinct cormorant populations or subspecies separated by the Central Asian highlands. By this point, the dispersal barrier between the northeastern and western cormorant populations was approximately 4,500 kilometres wide. The narrowest point in this barrier may have been the approximately five-kilometre-high Karakoram Pass near the headwaters of the Ganges, adjacent to the Karakoram range. This would have had to be crossed in order to reach the wetlands of Kyrgyzstan.
A massive natural dispersal barrier between Europe and Asia for the great cormorant
The mountains, steppes, dry steppes and deserts of the western and Central Asian highlands together form a contiguous area of approximately 9 million square kilometres spanning several zoogeographical zones, most of which do not constitute attractive cormorant habitat. This geographical barrier is of considerable importance when considering the evolutionary history and dispersal patterns of the great cormorant.
Allopatric speciation typically occurs when a physical barrier to dispersal arises within the range of a species, separating populations and restricting gene flow. For example, there may once have been an uninterrupted distribution of the ancestors of the great cormorant across the Eurasian continent, from Europe to Japan, before the Indian subcontinent collided with Eurasia, creating the Himalayas and raising the Central Asian highlands to approximately their present elevation 13–15 million years ago during the Miocene. In this process, the two populations may have become effectively physically separated, eventually giving rise to the ancestors of the atlantic great cormorant in the west and the continental great cormorant in the east.
It is difficult to imagine either the eastern or western cormorant crossing this region without human assistance. One hypothetical explanation for natural dispersal would be that the continental cormorant subsequently spread westward around the northern edge of the Central Asian mountain ranges, through southern Siberia, during the Holocene Thermal Maximum (10,300–7,900 BP). But if this were the case, one would also expect to find subfossil remains of great cormorants throughout the 4,200-kilometre-wide and approximately 3,000-kilometre-long belt between Lake Baikal and Europe, as well as a more continuous present-day distribution across this region. Neither is the case, despite approximately 37 archaeological excavations of Pleistocene layers in the area (Tyrberg 1998), as well as 22 archaeological excavations of Holocene bird remains dating from the 5th to the 17th centuries along the Volga River (Galimova et al. 2014), which forms the boundary between Europe and Asia north of the Caspian Sea.
The fact that great continental cormorants appear unlikely to have spread naturally westward through the northern part of the East Asian section of the great Palearctic zoogeographical bird region (Holt 2023) is readily explained by the fact that the area is, on average, simply too cold. It is therefore unlikely to be a coincidence that the present-day northern pan-Eurasian distribution of the continental cormorant almost exactly follows the southern edge of this zoogeographical bird region, which is based on both distributional and phylogenetic data from a wide range of Eurasian bird species.
There is, however, a present-day occurrence of continental great cormorants in the southern part of the Palearctic bird region between Tyumen in Russia and Shalkar in Kazakhstan. This area lies so far west of the Central Asian dispersal barrier that it does not support the idea of natural eastward dispersal by continental cormorants along this route. And had they arrived during the warmer period between 10.300 and 7.900 BP, one would also expect to find cormorant remains in the numerous excavations mentioned above. This part of the current breeding range may more plausibly have resulted from a westward expansion of the species’ range mediated by human activity.
The interactive map of ongoing cormorant observations across the region, including migration periods, provided by Bird Count India, offers a good visual representation of the absence of continental great cormorants across the Central Asian dispersal barrier. It also illustrates very clearly that the northern Central Asian breeding populations of continental great cormorants likewise fly around the barrier on their way to their southern wintering grounds.
Data from ringed European atlantic great cormorants, as presented on Migration Atlas, likewise provide little support for the idea that the two original Eurasian cormorant populations could have mixed simply through accidental dispersal during maigrations. Furthermore, the prevailing winds across the Central Asian plateau blow from west to east, which further reduces the likelihood that an east-to-west crossing of the Central Asian dispersal barrier could have occurred naturally — for example, through a vagrant individual from the eastern population.
It therefore appears unlikely that the two great cormorant populations, which were separated at the time, mixed naturally during either the Pleistocene or the Holocene. This leaves human-mediated dispersal as the most plausible explanation for the present-day distribution pattern. See also the excellent overview of great cormorant distribution on eBird.

This is how the eastern subspecies of the Great Cormorant — the continental cormorant (Phalacrocorax carbo sinensis) — may have spread from Asia to Europe with human assistance: The areas marked in blue represent the original distribution ranges of the Great Cormorant (Phalacrocorax carbo sp.), based on subfossil remains from the Pleistocene and Holocene (in Asia, the range has been roughly extrapolated from a limited number of finds): the Great Cormorant (Phalacrocorax carbo carbo) in western Europe and the continental cormorant in the Far East.
Marked in red is the Central Asian Dispersal Barrier — a vast, continuous region of high mountains, deserts and dry steppes that apparently originally separated the continental cormorant and Great Cormorant geographically, allowing them to develop into two distinct subspecies. The continental cormorant, which therefore appears unlikely to have been able to disperse naturally from east to west, may instead have been introduced through diffuse, human-mediated dispersal along the many overland (yellow) and maritime (blue) routes of the Silk Road. The thin dark-blue route represents Vasco da Gama’s sea route around the southern tip of Africa, which opened in 1498.The routes have been drawn schematically, based on the proposed trade routes of numerous historians. Following its arrival in Europe, the hypothesis is that the continental cormorant may have spread both westward and northwestward through a combination of “natural” and human-mediated dispersal. Illustration: Adobe Stock/Martin Millinge.
Did the two great cormorant subspecies spread through trade from east to west — or vice versa?
The present-day distribution of the continental great cormorant, as shown by BirdLife’s data zone, extends more or less continuously from Ireland in the west to Japan in the east, although there are considerably larger gaps in its distribution, particularly across West and Central Asia.
But we have just seen that the two subspecies were separated by a natural dispersal barrier more than 4,000 kilometres wide as recently as 4,000 years ago. The question, therefore, is whether the eastern population spread westward — or vice versa.
Evidence for cormorant fishing with domesticated continental cormorants dating back to 2,200 BP (He and Gremillet 2009), combined with extensive trade in these birds between all provinces of China (Gudger 1926), makes it highly plausible that they could have spread through local trade networks all the way to the great Central Asian dispersal barrier in the west. With human assistance, they may also have crossed the barrier and reached the western Asian steppes — even without any European demand for them.
Knowledge of cormorant fishing — and thus the potential beginnings of European demand for domesticated Asian continental cormorants — had nevertheless reached Europe by the middle of the 13th century at the latest, through the Dutch explorer William van Ruysbroeck (Olbur 2008). This, combined with extensive trade with chinese continental great cormorants for fishing, driven by regional and perhaps also emerging international demand, makes it plausible that Asian continental great cormorants were gradually, and perhaps in many separate waves over several centuries, transported westward by local traders and/or larger trading caravans along the Silk Road. They may have progressed in stages until eventually reaching the oases of fx Kyrgyzstan and, later, the Caspian Sea, from where they could have spread further westward “naturally” — without further human assistance.
The opposite scenario — the eastward dispersal of atlantic great cormorants from the west — appears unlikely. For one thing, the atlantic great cormorant does not currently have a distribution extending into either western or eastern Asia. More importantly, the present-day pattern suggests that the continental cormorant has gradually been moving its range farther north, northwest and northeast. There is no indication that the atlantic great cormorant was ever a traded commodity that could have been transported eastward.
There is therefore little evidence to suggest that the presence of continental great cormorants west of the Central Asian dispersal barrier is natural. Conversely, there is a strong basis for arguing that Asian continental great cormorants used for fishing could have been introduced into Europe either through direct importation (Olbur 2008) or through the gradual, diffuse, human-assisted dispersal outlined above.
Indeed, it seems almost implausible that such an obvious shortcut to several highly prestigious status symbols — involving a species so conspicuous and exotic in its use to Europeans — would not have been imported into Europe in one way or another over such a long period, just as other Asian bird species, such as pheasants and peafowl, were transported westward.

In the summer, it is primarily the Great Cormorant (*Phalacrocorax carbo sinensis*) that breeds in Denmark; however, during the autumn, there is a massive migration of cormorants into the country from surrounding regions, and later in the winter, many birds from the north overwinter here—including a number of the nominate subspecies Phalacrocorax carbo carbo.
Marcus Beike does not disprove Christer Olburs’ theory of the introduction of Asian continental great cormorants
Olburs’ theory (2008) proposed that European seafarers in the 15th and 16th centuries introduced Chinese fishing cormorants to the Netherlands, after which cormorant fishing — essentially the fishermen’s equivalent of “underwater falconry” — spread as a gentleman’s sport among European elites and royal courts throughout the 16th–19th centuries. Escaped birds could readily have become the source of the European population of continental cormorants.
The chronology and scenario fit well with the possibility that this may have occurred in the wake of Vasco da Gama’s discovery of the sea route to India in 1498, followed by Jorge Álvares establishing direct maritime trade routes to China in 1513. However, although the scenario is plausible, Christer Olburs’ theory never really gained widespread acceptance — probably largely because the German researcher Marcus Beike (2024) was considered to have refuted it.
Beike neither proves nor establishes that the continental great cormorant is native to Europe
Marcus Beike presented, among others, three main criticisms of Olburs’ theory:
1) There was no concrete evidence of a specific, documented shipment taking place at the appropriate time to support Olburs’ theory. This is correct, insofar as the earliest currently known written account of a specific and successful shipment of Chinese fishing cormorants from Asia to Europe dates to 1880 (Gudger 1926).
2) Beike argued that the Dutch fishing cormorants actually originated from birds captured and subsequently trained in England (Beike 2014), which could, in principle, quite plausibly have been atlantic great cormorants (Phalacrocorax carbo carbo).
3) Medieval accounts from 840 and 990 — the latter representing the earliest description of a cormorant in the European natural environment — together with references from the 12th–16th centuries, including the first European description of cormorants breeding in 1377, indicated to Beike that “continental great cormorants” were already present in Europe before the period in which Olburs proposed that they could have been introduced: “The analyses show that there is no evidence for the introduction of birds from China. Instead, a medieval breeding record as well as regular appearance of the cormorant in religious and secular literature from the middle ages show that the bird was at least temporarily well-known in deeper inland regions of the German-speaking area.” This led him to conclude that the evidence raised strong doubts about the hypothesis that Phalacrocorax carbo sinensiswas an introduced species.
This conclusion has subsequently been (incorrectly) interpreted by some as proof that the continental cormorant was originally native to Europe. The fact is, however, that Beike (2014) does not prove this. What his analysis actually establishes is simply that, so far, no documentation has been found for a specific shipment of Chinese continental cormorants to Europe. That does not establish whether the cormorants present in Europe at the time were sinensis or carbo.
Nor do the written sources referring to European cormorants in medieval Central Europe document or make it particularly likely that these birds were sinensis. There are several reasons for this.
First, sinensis was not formally defined as a subspecies by Blumenbach until 1798 — many centuries after the medieval accounts in question.
Second, reports of cormorants nesting in trees do not demonstrate that the birds involved were sinensis. Tree nesting is not a sufficiently conservative trait from an evolutionary perspective to serve as reliable evidence of subspecies identity. Both subspecies have been documented nesting on the ground, on cliffs and in trees (Brown 1935; Berrow et al. 2024, among others).
Third, the theory of gradual westward expansion through Europe, driven by competitive displacement, provides a plausible alternative explanation. What we today regard as the atlantic great cormorant’s principal breeding habitat — particularly cliffs — could simply be the result of sinensis gradually displacing carbo northwestward into the Atlantic region. In practical terms, coastal cliffs would have been among the most obvious, secure and readily available nesting habitats remaining there.
If Beike’s personal interpretations are set aside, none of the factual information presented in his articles is actually incompatible with a theory in which continental great cormorants of Asian origin gradually spread through Europe and progressively displaced Great Cormorants over a period perhaps spanning fx 500–1.500 years.

An adult cormorant eats an average of about half a kilogram of fish a day—and is particularly fond of fish like perch, such as the one you see here. Photo: Adobe Stock.
Direct and diffuse dispersal theories for the spread of continental cormorants from Asia to Europe are not mutually exclusive
The two proposed models for the human-mediated spread of Asian continental cormorants into Europe — diffuse dispersal and direct introduction — are not inherently contradictory. Nor does one exclude the other.
Even if domesticated Asian continental great cormorants were very likely transported to Europe through trade over many centuries, across a broad network of trans-Asian trading routes, this does not rule out the possibility that specific direct shipments were also commissioned or undertaken by Europeans. We simply have not yet found documentary evidence of such shipments.
The earliest recorded example illustrating European interest in this possibility is a Dutch envoy who, as early as 1655–57, attempted to purchase a fishing cormorant in China (Gudger 1926). The owner refused to sell the bird, but the episode clearly demonstrates that there was already European interest in obtaining “fishing cormorants.” It is therefore entirely possible that historical documents documenting direct shipments of fishing cormorants from China to Europe do exist, but have either been lost or have simply not yet been discovered.
As the digitisation of historical documents accelerates, combined with rapidly improving AI-assisted translation and searches of original sources from across Eurasia and East Africa — regions to which many of the maritime Silk Road routes also extended — it is quite conceivable that substantially more information will emerge in the future. Such discoveries could shed new light on the possible trade and human-mediated dispersal of fishing cormorants from east to west.
The Silk Road — diffuse human-mediated dispersal of continental great cormorants from Asia to Europe
As mentioned, cormorant fishing was widespread among poor communities throughout China, while Asian continental cormorants were traded extensively between all of China’s provinces and presumably in many other parts of Asia as well. There must therefore have been enormous numbers of domesticated continental cormorants in the Far East — perhaps as early as the 5th–10th centuries, or even considerably earlier. With such large numbers of domesticated birds, and the resulting potential for escapes, wild populations of continental great cormorants in Asia may also have carried a significant proportion of domestication-related genes associated with highly efficient, selectively bred fishing abilities.
In my view, diffuse dispersal through both time and space — whereby trade between neighbouring villages gradually transported domesticated birds, or genes carried by escaped and subsequently wild birds, farther and farther westward — is therefore highly plausible. This may have occurred in stages of just a few kilometres at a time, either overland or with the cormorants transported in small boats.
Along the way, and over the course of many years, escaped domesticated birds may have interbred with wild birds and established small local populations. Birds from these populations may subsequently have been captured and trained again, then transported farther west, and so on. Such a process could have continued continuously for many hundreds, or perhaps more than a thousand, years.
It may have occurred along countless parallel routes, connected to some of the north–south-oriented trade routes that eventually converged with the main Silk Road routes across the Central Asian highlands. From there, the birds could readily have been transported with human assistance along the many branches of the Silk Road — for example to oases and wetlands in Tajikistan, Kyrgyzstan and the border region between Xinjiang and Kazakhstan, where the birds would have had access to abundant water and fish.
This could have happened via the northern routes, as well as via the southern Silk Road through the Ganges Valley and across the Karakoram Pass to the same region.
A gradual, human-mediated dispersal over shorter distances may, in practical terms, have been easier than long, uninterrupted journeys. Obviously, the more stops there were along the way, the easier it would have been to keep the cormorants alive and in good condition by providing them with food and water.
He (2009), however, notes that the diet of young cormorants was often supplemented with tofu, a food that has been consumed in China for approximately 2,000 years. Tofu could therefore readily have been used to keep cormorants alive during longer journeys, where low weight, limited space requirements and shelf life would have been crucial: Tofu can be dried and stored for up to a year before being rehydrated in water prior to consumption. These properties could conceivably have made it easier to transport food for the cormorants over long distances through arid regions. Even at the smallest spring, stream or oasis where no fish were available, traders could have supplemented the birds’ diet — or fed them rehydrated, air-dried tofu — allowing them to survive the journey.
From the Central Asian oases and wetlands, continental cormorants could either have been transported and traded farther west, and/or established wild populations from escaped birds. These populations could gradually have expanded westward through wetland corridors, combined with shorter flights across dry areas to reach new suitable habitats farther west across the steppes of western Asia.
In this way, Asian continental cormorants may eventually have reached the Caspian Sea and potentially what was once the eastern edge of the original range of the atlantic great cormorant, represented by subfossil great cormorant remains from Azerbaijan (Tyrberg 1998).
Another obvious route westward would have involved overland transport combined with the many shorter stages of the maritime Silk Road. Through the ports of India and the Middle East, Asian continental cormorants could gradually have been transported as far as the Red Sea and Egypt. There, they would have reached what may originally have been the southeastern range of the western great cormorant — a possibility supported, as mentioned earlier, by Pleistocene finds from Egypt and Holocene finds from Saudi Arabia.

Today there are approximately 30.000 breeding pairs of cormorants in Denmark.
The continental great cormorant arrives from the east and conquers Europe
If this theory is correct, and the Asian continental great cormorant gradually conquered Europe from southeast to west and north, either as a breeding species and/or as a resident population, then the Asian continental great cormorant must have possessed a particularly significant advantage.
How else could it potentially have outcompeted the somewhat larger Great Cormorant as it expanded westward? In many cases, larger animals of the same type tend to dominate smaller ones. One possible answer may lie in the fact that, for perhaps more than 2,000 years, humans have artificially selected continental great cormorants very strongly for superior fishing efficiency.
Studies have shown that increased foraging efficiency, unsurprisingly, results in greater breeding success (Daunt et al. 2007) — and could therefore also provide a greater capacity to expand its range by subjecting the atlantic great cormorant to intense interspecific competition.
Domesticated continental great cormorants in Asia were forced and trained to catch far more fish than wild birds because they first had to catch fish for human consumption and then catch additional fish for themselves and their offspring. Based on extensive studies of Chinese literature and field observations, He and Grémillet (2009) report that a cormorant often had to catch around eight fish before it was allowed to keep one for itself — typically one of the smaller fish. From a purely fishing perspective, Chinese fishing cormorants therefore had to perform considerably more than wild great cormorants, which “only” had to catch enough fish for themselves and their offspring.
As with other animals domesticated by humans over thousands of years, the best-performing continental cormorants would naturally have been selected for breeding. Over hundreds of generations, this could have resulted in strong directional selection for increasingly efficient fishing abilities, potentially giving Asian continental great cormorants a set of characteristics that subsequently enabled them to outcompete the Great Cormorant.
The Baltic Sea — when the great cormorant disappeared and the continental great cormorant took over
The distribution pattern we see today, in which the continental cormorant has progressively expanded farther westward and northward through Europe, fits well with the theory that the Asian continental great cormorant gradually replaced the original atlantic great cormorant from the east. This is also consistent with earlier studies (Stewart 2002; Ericson & Carrasquilla 1997).
Based on extensive morphometric studies of cormorant bones from the Baltic region, the latter authors were able to establish that up until the 13th–15th centuries, and perhaps considerably later, the Baltic region was inhabited exclusively by Great Cormorants. The last documented record is depicted in a painting from 1695 (Olburs 2008).
Ericson and Carrasquilla link the disappearance of the Great Cormorant to a decline in the salinity of the Littorina Sea:
“Maybe the salinity sank below some threshold value after 1500 AD causing the P. c. carbo to cease breeding in the Baltic. Simultaneously, the environment slowly transformed into that preferred by P. c. sinensis, which seems to have colonized the region soon after.”
This interpretation, however, does not fit well with palaeosalinity models and proxy values for Baltic Sea salinity during the same period (Vestmand et al. 1999). These indicate that salinity in the Baltic Sea has remained essentially unchanged since the 6th century. And even when salinity peaked in the Baltic approximately 5.000–6.000 BP, it was apparently not too high for a continental cormorant, judging from where the subspecies normally breeds and forages today — both in the Atlantic and in the oceanic salinity found along the Chinese coast.
The potential competitive advantage of the continental great cormorant over the atlantic great cormorant is therefore unlikely to have been related to lower salinity. If it were, one would expect to see an increasing proportion of continental great cormorants in the bone assemblages throughout the Subboreal (5.000–2.500 BP) and Subatlantic (2.500 BP to present) periods, leading up to the point when the continental cormorant eventually became the dominant breeding subspecies in the Baltic region. This is not the case.
If salinity really was a decisive factor for the two cormorant subspecies, it also seems peculiar that the atlantic great cormorant apparently has no problem today overwintering and foraging in precisely the same salinity conditions that it supposedly abandoned in the 13th–15th centuries — or perhaps not until as late as the 17th–18th centuries.
This could indicate that the transition from an original atlantic great cormorant population in the Baltic region to an increasing dominance of continental great cormorants at breeding colonies from around the 17th–18th centuries was actually caused by other factors. One possibility is that this period simply happens to coincide with the point at which the continental cormorant, during its gradual conquest of Europe toward the north, reached the Baltic Sea.
The continental cormorant was first recorded in Denmark, Sweden, England, Finland, the Baltic States and Norway at various points between the 19th century and the end of the 20th century. The fact that the first specimens identified to subspecies in these regions date from this period does not necessarily tell us much about the precise year of arrival. It may instead be an artefact of the fact that the continental great cormorant was not formally defined as a subspecies until 1798, followed by increasing awareness of whether an observed great cormorant belonged to one subspecies or the other. Even with the best binoculars available today, and a trained eye, the two subspecies can be extremely difficult to distinguish in the field.

Even for trained ornithologists, it is difficult to distinguish between the atlantic great cormorant and the continental great cormorant – nor is it possible to tell them apart based on individual bone finds, due to the significant size difference between males and females and the substantial overlap between the two species. Only through extensive morphometric studies based on a large statistical dataset is it possible to determine which species is present in a given area.
Allopatric subspecies differentiation in cormorants is more plausible than sympatric differentiation
Today, the two subspecies, atlantic great cormorant and continental great cormorant, occur sympatrically in Europe — that is, they occupy the same geographical areas without an impassable natural dispersal barrier separating them.
If we assume that the continental cormorant was indeed native to Europe and had been present here for, say, hundreds of thousands of years, we would also need to explain how the separation between the two subspecies could have been maintained over such a long period. There would have to be some mechanism maintaining the distinction — for example, preferences for different habitats.
If a preference for saline coastal habitats versus freshwater inland habitats were the basis for the differentiation between the Great Cormorant and continental cormorant, we would expect two things:
- The formation of two similarly stable and distinct subspecies in China.
- If atlantic great cormorants and continental great cormorants had genuinely coexisted naturally in Europe for, say, hundreds of thousands of years, with their status as separate subspecies being stably maintained over time through niche differentiation based on preferences for saltwater and freshwater habitats, we would expect them not to hybridize, but instead to diverge genetically.
Neither of these predictions appears to be supported.
First, there is only one clearly established subspecies in China — the continental great cormorant — and it occurs both inland in freshwater habitats and along the East Asian coast, where it forages in waters with salinities of up to 30–40‰ (Huang 2025). The japanese great cormorant — Phalacrocorax carbo hanadae — which is almost identical to the continental great cormorant, is normally grouped together with the continental cormorant as sinensis/hanadae, since, as indicated above, there is uncertainty as to whether it actually constitutes a distinct subspecies.
Second, recent genetic studies have documented introgressive hybridization between Great Cormorants and continental cormorants in Norway and Britain (Winney et al. 2000; Grøndahl & Johnsen 2024). Rather than helping to maintain the distinction between the subspecies, such gene flow would instead tend to erode that distinction over time. Grøndahl and Johnsen (2024) conclude: “Our results suggests that gene flow is more common from sinensis into carbo than vice-versa…”
The snapshot we see in 2026 — with the majority of continental great cormorants occurring inland and around freshwater and brackish-water habitats, while the majority of atlantic great cormorants are found along the Atlantic coast — could therefore simply be an artefact of the eastern continental great cormorant having expanded westward, and toward the west and northwest through Europe, with human assistance and through interspecific competition.
The continental great cormorant — non-native and invasive in Europe?
Based on the current state of knowledge about the continental great cormorant, everything, in my view, currently points towards there being considerably more scientifically based evidence that the European continental great cormorant is non-native and potentially invasive than there is evidence that it was originally native to Europe.
A definitive clarification of the continental great cormorant’s dispersal history and its status as native or non-native in Europe will require an extensive genetic study — ideally involving aDNA from subfossil great cormorant remains from across Eurasia, combined with DNA analyses of contemporary great cormorants from throughout their present range.
However, this is unlikely to be straightforward. While a deliberate introduction of Asian continental cormorants, as proposed by Olburs (2008), would presumably leave a genetic bottleneck, a more diffuse, human-mediated dispersal across a broad front in both time and space would probably produce a far more diluted genetic signal.
Until the continental great cormorant’s dispersal history has been conclusively clarified through DNA analyses, there is, from a management perspective, an argument for applying the precautionary principle. For the time being, this should entail strong regulation of continental cormorant populations in Europe, so that they:
- are reduced to a population level that neither places the probably original atlantic great cormorant at risk of irreversible genetic contamination or dilution; nor
- negatively impacts existing native fishspecies, particularly those that are vulnerable.
This, together with the question of whether the EU Birds Directive should be revised, and whether the continental great cormorant should, from a management perspective, be formally categorized as an invasive species, will be the focus of the third and final article in the series, coming soon to fiskogfri.dk.
GREAT CORMORANT LITTERATURE:
Beike, M: “The history of Cormorant fishing in Europe”, Die Vogelvelt 133: 1-21 (digital engelsk version), 2012.
Beike, M: “Phalacrocorax carbo sinensis in Europe – indigenous or introduced?” Ornis Fennica 91: 48-56. 2014.
Berrow et al: ”Cormorants Phalacrocorax carbo breeding in Special Protection Areas in the Shannon Estuary and adjacent waters”, Irish Birds 47: 1–8, 2025.
Bliedtner, M. et al: “Holocene Temperature Variations in Semi-Arid Central Mongolia—A Chronological and Sedimentological Perspective From a 7400-year Lake Sediment Record From the Khangai Mountains”, Sec. Quaternary Science, Geomorphology and Paleoenvironment, Vol. 10, 2022.
Boev, Z.N: “The Holocene avifauna of Bulgaria (A review of the orni-archeological studies)”, Historia naturalis bulgarica, 6, 59-81, 1996.
Boev, Z.N: “Fossil birds in the National Museum of Natural History, Sofia: composition, development and scientific value. Zool. Med. Leiden 79-3 (4), 35-44, 30-ix. 2005.
Bregnballe, T og Gregersen, J: ” Udviklingen i ynglebestanden af Skarv Phalacrocorax carbo sinensis i Danmark 1938-1994#, Dansk Om. Foren. Tidsskr. 89: 119-134, 1995.
Browne, T: “An account of birds found in Norfolk. In Sir Thomas Browne´s works, Vol. 4 (ed. Wilkin, S) 311-323, Pickering, London.
Bulleid, A., & Gray, S. G: “The Glastonbury Lake Village”. Glastonbury Antiq. Soc. 2: 632-637, 1911-17
Daunt et al: “Older and wiser: improvements in breeding success are linked to better foraging performance in European shags”, Functional Ecology, vol. 21,3. 2007.
Ericson, G, P og Carrasquilla, H: ”Subspecific identity of prehistoric Baltic cormorants Phalacrocorax carbo”, Ardea 85: 1-7. 1997
Galimova, D, N et al: “Bird Remains from the 5th – 17th Century AD Archaeological Sites in the Middle Volga Region of Russis”, International Journal of Osteoarchaeology, Int. J. Osteoarchaeol., 2024.
Grøndahl, F, A og Johnsen, A: ”Combining biometrics and genetics to distinguish two subspecies of the Great Cormorant Phalacrocorax carbo carbo and P. c. sinensis at an inland lake in southeast Norway. Ornis Norvegica 47: 25-40, 2024.
He, L og Grémillet, D: ”A review of the current knowledge and status of tame Great Cormorants Phalacrocorax carbo in China”, BirdingASIA, 12, 103-106, 2009.
Holt et al: ”An Update of Wallace’s Zoogeographic Regions of the World”, Science 339, p. 76. 2013.
Huang, S et al: “Long-term monitoring data inform conservation strategies for waterbirds in the abandoned tropical salt pans of Budai, southwestern Taiwan”, Global Ecology and Conservation, 62:e03736, 2025.
Liang, Q. et al: ”Subsistence strategies in the Late Neolithic and Bronze Age in Nenjiang River Basin: A zooarchaeological and stable isotope analysis of faunal remains at Honghe site, Northeast China. International Journal of Osteoarchaeology, 1–14. 2023.
Monchot, H:” Arabian Animal Remains from the Bronze Age to the Historical Period: a State of Research”, In Athirat: Journal of Ancient Atabia 2 (2026) 165–196, 2026
Nomokonova, T:” A 9,000 Year History of Seal Hunting on Lake Baikal, Siberia: The Zooarchaeologyof Sagan-Zaba II, 2015.
Olburs, C: “The chinese cormorant Phalacrocorax carbo sinensis Blumenbach 1798 – An attempt to understand a complex biological question”, 2008.
Stevart, J, R: “Sea-birds from coastal and non-coastal, archaeological and“natural” Pleistocene deposits or not all unexpected depositionis of human origin”, Acta zoologica cracoviensia, 45(special issue): 167-178, Kraków, 2002.
Tyrberg, T. ”Pleistocene birds of Palearctic – a catalouge”, 1998.
Wang et al, “Ancient DNA insights into Neolithic bone-tool use on the Tibetan Plateau, Journal of Archeologival Science , article 106183, Vol. 177, 2025.
Westman et al: “Salinity change in the Baltic Sea during the last 8,500 years: evidence, causes and models”, Oceanus Havsundersökningar, Göteborg, 1999.
Winney, B, J er al: “The subspecific origin of the inland breeding colonies of the cormorant Phalacrocorax carbo in Britain”, Heredity 86, 45-52, 2001.
Zeder, M & Spitzer, M: ”New insights into broad spectrum communities of the Early Holocene Near East: The birds of Hallan Çemi“,Quaternary Science Reviews 151(2):140-159, 2016.
NOTES:
– Ericson and Carrasquilla (1997) mention three “sinensis” bones from Bulgaria (3,000 BP), which were used to investigate whether the continental cormorant may have changed in size over time. However, these do not document the presence of an original continental cormorant population in Europe, because reliable identification can only be achieved through larger-scale morphometric studies, as explained in Part 1. This is probably also why no Bulgarian subfossil collections contain Phalacrocorax carbo bones identified to subspecies level (Boev 1996 and 2005).
– Beike (2014) argues that a cormorant specimen found in inland Europe (Brehm, 1824), later identified by Claud B. Ticehurst (1923), was identical to Blumenbach’s type specimen of sinensis*. In my view, the discussion of why the continental cormorant was given the subspecies name* sinensis*, meaning “the Chinese cormorant,” is based on anecdotal ambiguity from which it is difficult to draw any firm conclusions. The origin of the name* sinensis is ultimately irrelevant, since there is substantial evidence that the subspecies could have spread to Europe with human assistance in several different ways — regardless of what its Latin name happens to be.
sep 11, 2026 | Artikler, Miljø og debat, Nyheder
Subfossile fund af skarv viser, at bestanden i Europa og Asien i forhistorisk tid var adskilt af en massiv naturlig spredningsbarriere i det centralasiatiske højland, som delte fuglene i to populationer. Alt taler for, at spredning af mellemskarv fra øst mod vest kun kan være sket ved menneskelig hjælp, hvormed der er god evidens for, at den europæiske mellemskarv ikke er en oprindelig del af den danske og europæiske natur.
AF JENS BURSELL, BIOLOG, FOTOS: LARS LAURSEN & ADOBE STOCK
Der findes – som afklaret i del 1 – hverken subfossil eller genetisk dokumentation for, at mellemskarven er en oprindelig del af den danske natur. Og – når det på basis af fåtallige knoglefund ikke er muligt at differentiere på mellem- og storskarv i Danmark, så gør det samme sig naturligvis også gældende i resten af Europa, hvor der p.t. heller ikke er hverken subfossil eller genetisk dokumentation for, at mellemskarven er en oprindelig del af naturen.
De fleste tidligere studier af den europæiske skarvs historie har fokuseret relativt snævert uden at se dens historie i et større tidsmæssigt og geografisk perspektiv. For at afklare mellemskarvens herkomst i/til Europa, er det derfor oplagt at kigge videre på subfossile fund, zoogeografiske zoner og naturlige spredningsbarrierer i Eurasien i forhistorisk tid gennem epokerne Holo- og Pleistocæn. Dette – kombineret med en evolutionær interdisciplinær vinkel – kan give et nyt evidensbaseret bud på spredningshistorikken for skarven – Phalacrocorax carbo samt dens to underarter storskarv (carbo ssp.) og mellemskarv (sinensis ssp.).

Diffus spredning af mellemskarv vestpå fra Asien mod Europa af mennesker fx via Silkevejen er en ud af flere mulige forklaringer på, hvordan den tidligere geografisk isolerede asiatiske mellemskarv kan have nået frem til Europa, hvor den sidenhen har spredt sig vidt og bredt. (AI GENERET – Jesper Fohrmann)
Diffus menneskelig og ”naturlig” spredning af mellemskarv fra Asien – vestpå til Europa
Mit bud på, hvad der bedst kan forklare den nuværende udbredelse af mellemskarv på verdensplan er, at storskarven er den oprindelige europæiske underart, som har været geografisk adskilt fra mellemskarven i Østasien af den store centralasiatiske spredningsbarriere. Herefter kan der være sket en gradvis og diffus spredning ved menneskelig hjælp fra Østasien over den centralasiatiske spredningsbarriere vestpå til Øst- og Sydeuropa over en længere periode på måske 500-1.000 år. Det kan både være sket langs Silkevejens omfattende net af landlige og maritime handelsruter – eventuelt kombineret med mere direkte transporter eller decideret import (Olburs 2008).
Herefter er det sandsynligt, at der kan have været sket (a) videre ”naturlig” og (b) unaturlig spredning af mellemskarv V, NV og NØ-over gennem Europa, hvor (a) mellemskarven gradvis har udkonkurreret storskarven og b) evt. direkte introduktioner fra Asien og/eller re-domesticering af ”vildt indvandrede” mellemskarv af asiatisk oprindelse har accelereret spredningen af mellemskarv yderligere nordover. Sidstnævnte kan oplagt være sket efter, at interessen for jagt med fiskeskarv eskalerede fra starten af 1500-tallet i Venedig (Olburs 2008, Beike 2013, 2014) og senere forstærket af interessen for skarvjagt i renæssancens Frankrig, Holland og England (Olburs 2008, Beike 2013, 2014).
Denne nye teori om gradvis indførsel af asiatiske mellemskarv til Europa over en bred front i tid og rum – kombineret med ”naturlig spredning” af dens asiatiske gener op gennem Europa er ikke i konflikt med faktuelle oplysninger og konkrete resultater fra tidligere studier, men underbygger og forklarer snarere en række af de hidtil ubesvarede spørgsmål, som tidligere undersøgelser og litteraturstudier har affødt. Her får du baggrunden for mit synspunkt:
7.500 km mellem europæiske og asiatiske skarv i Pleistocæn
Tidsalderen, der ligger før 11.700 år siden, hedder Pleistocæn. Her er der registreret fund af skarv i de fleste europæiske lande som fx England, Irland, Tyskland, Tjekkiet, Italien, Schweitz og Spanien samt Israel, Egypten og længst mod øst – Aserbajdsjan. De to tætteste fund fra Danmark var fra Bayern og Norfolk – begge cirka 800 kilometer væk (Tyrberg 1998).
I hele Central- og Østasien er der kun ét sted, hvor skarven er fundet i denne tidsperiode – nemlig Japan (Tyrberg 1998). Her er det iøjnefaldende, at der er masser af fund i Europa – ingen overhovedet i Vest- og Centralasien – og så to fund i Japan.
Allerede her er det oplagt at tænke, at den vestlige, europæiske/mellemøstlige underart kunne være forfader til storskarven (Phalacrocorax carbo carbo) og den østlige underart forfader til mellemskarven (Phalacrocorax carbo sinensis) – samt at de to oprindeligt har været allopatrisk adskilt af en cirka 5-6.000 kilometer bred naturlig spredningsbarriere gennem Irans ørkener og bjergkæder, Nordpakistans bjerge, bjergkæderne Hindu Kush, Karakoarm, Pamir, Alai, Tien-Shan med bagvedliggende Himalaya, Det Tibetanske Plateau, Talamakan og Gobi Ørkenen samt Mongliets højsletter. Endvidere har store dele af området fra Østsiden af Det Kaspiske hav til vestsiden af det centralasiatiske højland været tørre stepper og ørkner, hvoraf hovedparten har været uegnet skarvhabitat – hvilket yderligere har besværliggjort en øst-vest spredning af underarterne (se verdenskortet nedenfor)
Fraværet af Pleistocæne skarvfund i dette bælte tværs over Asien fra Japan til Aserbajdsjan skyldes ikke fravær af relevante udgravninger her, eftersom der er foretaget 37 udgravninger med analyser af subfossile fugleknogler fra Iran, Irak, Kazakhstan, Kirgisistan, Uzbekistan, Mongoliet, Kina og den asiatiske del af Rusland (Tyrberg 1998) – uden at der er fundet én eneste skarv.

Når skarver trækker, flyver de i snit cirka 60-100 kilometer om dagen, inden de slår sig ned i et vådområde for at hvile og fouragere på friskfangede fisk. Selvom skarven kan flyve op til flere hundrede kilometer i et stræk, er det således usandsynligt, at den østlige underart af skarv – mellemskarven – skulle have spredt sig naturligt over den mange tusinde kilometer tørre og høje centralasiatiske spredningsbarriere, der ligger mellem de to oprindelige udbredelsesområder – Europa/Mellemøsten og den geografisk isolerede population i fjernøsten.
Europæiske og asiatiske skarv i Holocæn 11.700 år tilbage i tiden
Holocæn byder også på mange fund af skarv i Europa (Bregnballe og Gregersen 1995, Ericson og Carrasquilla 1997, Bullied og Grey 1911-17, Stewart 2002).
Søger man efter asiatiske subfossile fund af skarv fra Holecæn, er der fund fra SØ Tyrkiet ved Øvre Tigris 11.700-10.500 BP (Zeder & Spitzer 2016) samt Saudi Arabien fra cirka 5.000 BP (Monchot 2026), der oplagt kunne tilhøre den vestlige storskarv. NØ for dette områder ligger Den Persiske Golf samt ørknerne i Iran og Afghanistan som en massiv spredningsbarriere NØ på i retning af de centralasiatiske plateau.
Endvidere er der fund fra 9.020-8.650 BP fra Baikal Søen i Sibirien (Nomokonova et al. 2015), men da dette fund ligger nord for den nuværende nordligste udbredelse – sandsynligvis på grund af det Holocæne temperatur maximum, der netop lå fra 10.300 – 7.900 BP, er dette fund mindre relevant i forhold til historikken omkring evt. menneskelig spredning af mellemskarv vestpå, da dette var langt før den tid, hvor skarverne blev domesticeret (diskuteres nedenfor). Den koldeste periode på det nordcentralasiatiske plateau lå fra 4.000-200 BP (Bliedtner 2022), hvilket netop må have gjort det ekstra svært for kinesiske mellemskarv/fiskeskarv at sprede sig naturligt vestpå i de par tusind år, hvor skarvdomesticeringen kan været opstået samt udviklet – og eksakt samme periode, hvor handelen på Silkevejen toppede.
Desuden er der subfossile fund af skarv fra Asien fra 4.000 BP verificeret med aDNA fra Det Tibetanske Plateau 300 km vest for Lhasa (Wang et al. 2025). Disse kunne oplagt være en del af den østlige mellemskarv. Lhasa floden ender i Brahmaputra, som flyder sammen med Ganges inden udmundingen i Den Bengalske Bugt, hvilket indikerer, at der sikkert også har været mellemskarv i Nordindien på det tidspunkt. Hertil kommer fund fra 7.000-4.500 BP fra det østkinesiske lavland (Liang et al. 2023).
Dette underbygger yderligere, at der også langt senere hen i Holocæn sandsynligvis stadig har været to populationer eller underarter af skarv – adskilt af det centralasiatiske højland. På dette tidspunkt var der nu en 4.500 kilometer bred spredningsbarriere mellem den nordøstlige og vestlige bestand af skarv. Det smalleste sted på spredningsbarrieren har været det cirka fem kilometer høje Karakoram Pas ved kilderne af Ganges op imod bjergkæden Karakoram, der ville skulle passeres, for at komme ned til vådområderne i Kirgisistan.
En massiv naturlig spredningsbarriere mellem Europa og Asien for mellemskarven
Det vest- og centralasiatiske højlands bjerge, stepper, tørstepper og ørkener udgør i alt et sammenhængende areal på omtrent 9 millioner kvadratkilometer gennem flere zoogeografiske zoner, hvoraf hovedparten ikke er attraktive skarvhabitater. Netop denne geografiske barriere har stor betydning, når man skal forholde sig til skarvens evolution og spredningshistorik.
En allopatrisk arts- eller underartsdannelse sker typisk, når en fysisk impassabel spredningsbarriere opstår inden for en arts udbredelsesområde. Eksempelvis kunne der have været en ubrudt udbredelse af forfædrene til skarven over det Eurasiske kontinent fra Europa til Japan, inden Det Indiske Subkontinent kolliderede med Eurasien, og skabte Himalaya samt hævede det centralasiatiske højland til det niveau, det er i nu for 13-15 millioner år siden under Miocæn. I denne proces blev underarterne effektivt fysisk adskilt som forfædrene til hhv storskarv i vest og mellemskarv i øst.
Det er svært at forestille sig, at den østlige eller vestlige skarv, skulle have krydset dette område uden menneskelig hjælp. En hypotetisk forklaring for naturlig spredning kunne være, at mellemskarven efterfølgende havde spredt sig naturligt vestpå nord om de centralasiatiske bjergområder gennem det sydlige Sibirien i det Holocæne temperaturmaximum (10.300 – 7.900 BP). Men – hvis det var tilfældet, så ville man også forvente at se subfossile fund af skarv/mellemskarv i det 4.200 kilometer brede og 3000 kilometer høje bælte mellem Baikal og Europa samt en mere sammenhængende nutidig udbredelse her. Ingen af delene er tilfældet, på trods af cirka 37 arkæologiske fugleudgravninger af Pleistocæne lag i området (Tyrberg 1998) – samt 22 arkæologiske Holocæne udgravninger af fugle fra 500-1.700 tallet omkring Volgafloden (Galimova et al. 2014), der danner grænse mellem Europa og Asien nord for Det Kaspiske Hav.
At mellemskarverne således næppe har bredt sig naturligt mod vest nordover gennem den østasiatiske del af den store palæarktiske zoogeografiske zone for fugle (Ben Holt et al. 2013), skyldes oplagt, at det gennemsnitligt er for koldt her. Det er således næppe tilfældigt, at mellemskarvens nuværende nordlige pan-eurasiske udbredelse nærmest eksakt følger sydkanten af denne zoogeografiske fuglezone, som er baseret på data for både udbredelse og fylogeni af en lang række eurasiske fuglearter. I den nutidige udbredelse af mellemskarv er der dog en forekomst i den sydlige del af den palæarktiske zoogeografiske fuglezone mellem russiske Tjumen og Kazakhstanske Shalkar. Dette område dog ligger så langt vest for den centralasiatiske spredningsbarriere, at det ikke sandsynliggør en naturlig spredning mod øst af mellemskarv denne vej, og var den kommet i den varmere periode fra 10.300 – 7.900 BP, ville man også forvente fund af skarv i de førnævnte mange udgravninger i regionen. Denne del af det nuværende yngleområde kan mere oplagt være afledt af en vestlig ekspansion af udbredelsesområdet medieret af menneskelig aktivitet.
Bird Count Indias interaktive kort over løbende skarvobservationer hen over hele året i regionen – inklusiv trækperioderne, giver en god visualisering af fraværet af mellemskarv over den centralasiatiske spredningsbarriere – samt illustrerer meget godt, at de nordlige centralasiatiske ynglepopulationer af mellemskarv også flyver uden om spredningsbarrieren på vej mod de sydlige overvintringspladser. Data på ringmærkede europæiske skarv, som ses på migrationatlas.org, sandsynliggør heller ikke, at opblanding mellem de to oprindelige Eurasiske skarvpopulationer, kan være sket ved et simpelt fejltræk. At den fremherskende vindreting på det centralasiatiske plateau går fra vest mod øst undersøtter usandsynligheden for, at en spredning over den centralasiatiske spredningsbarriere fra øst mod vest kan være sket naturligt ved eksempelvis et fejltræk i den østlige population.
Det forekommer således usandsynligt, at de to dengang adskilte skarvbestande har blandet sig naturligt hverken i Pleisto- eller Holocæn, hvilket kun efterlader den mulighed, at det nutidige udbredelsesmønster vi ser i dag sandsynligvis er betinget af menneskelig spredning. Se også et godt billede af udbredelsen af skarv på ebird.org.

Sådan kan den østlige underart af skarv – mellemskarven (Phalacrocorax carbo sinensis) – have spredt sig fra Asien til Europa ved menneskets hjælp: Med blåt er markeret de oprindelige udbredelsesområder af skarven (Phalacrocorax carbo sp.) baseret på subfossile fund gennem Pleisto- og Holcæn (i Asien groft extrapoleret ud fra få fund): Storskarven (Phalacrocorax carbo carbo) mod vest i Europa og mellemskarven i fjernøsten. Markeret med rødt ses Den Centralasiatiske Spredningsbarriere – et stort sammenhængende områder af høje bjerge, ørkner og tørre stepper, der tilsyneladende oprindeligt har adskildt mellemskarv og storskarv geografisk, hvorved de har udviklet sig til to selvstændinge underarter. Mellemskarven – der således næppe har kunnet sprede sig naturligt fra øst mod vest, kan således have være indført via diffus human-medieret spredning af silkevejens mange landlige (gule) og maritime (blå) ruter. Den tynde mørkeblå rute er Vasco da Gamas sørute syd om Afrika, der åbnede i 1498. Ruterne er indtegnet med løs hånd på baggrund af adskillige historikeres bud på handelsruterne. Efter ankomsten til Europa er hypotesen, at mellemskarven kan have bredt sig både Vest og Nordvestover som en kombination af “naturlig” og menneskelig spredning. Illustration: Adobe Stock/Martin Millinge.
Har de to underarter af skarv spredt sig med handel fra øst mod vest – eller omvendt?
Den nutidige bestand af mellemskarv er som vist på datazone.birdlife.org vidt udbredt mere eller mindre kontinuerligt fra Irland i Vest til Japan i øst – dog med en del større huller i udbredelsen især tværs over Centralasien.
Men – vi har lige set, at de to underarter var adskilt af en over 4.000 kilometer bred naturlig spredningsbarriere for 4.000 år siden, så spørgsmålet er, om den østlige population har bredt sig mod vest – eller omvendt?
Dokumentation for fiskeri med domesticerede mellemskarv siden 2.200 BP (He og Gremillet 2009) kombineret med omfattende handel med disse mellem alle Kinas provinser (Gudger 1926) sandsynliggør, at de med meget stor sandsynlighed kan have spredt sig med lokal handel hele vejen op til den store centralasiatiske spredningsbarriere mod vest – samt med menneskelig hjælp sandsynligvis også over denne og frem til de vestasiatiske stepper – selv uden efterspørgsel fra Europa.
Viden om skarvfiskeriet – og dermed også kimen til en potentiel efterspørgsel på domesticerede asiatiske mellemskarv – nåede dog allerede Europa senest i midten af 1200-tallet med den hollandske opdagelsesrejsende William van Ruysbroeck (Olburs 2008). Dette – kombineret med en omfattende handel med kinesiske mellemskarv til fiskeri forårsaget af regional og måske også spirende international efterspørgsel – sandsynliggør, at asiatiske mellemskarv gradvist og måske i mange omgange over adskillige århundreder kan have været ført med lokal transport og/eller måske større handelskaravaner på Silkevejen trinvist videre vestpå, indtil de til sidst er nået de kirgisiske oaser og senere Det Kaspiske Hav, hvorfra de kan have bredt sig videre ”naturligt” vestover – selv uden menneskelig hjælp.
Det omvendte – spredning af storskarv fra vest mod øst, forekommer usandsynligt. Dels fordi storskarven ikke p.t. har hverken vest- eller østasiatisk udbredelse, men også fordi det nutidige billede mere tyder på, at mellemskarven gradvist rykker sin udbredelse længere og længere N, NV og NØ over. Intet tyder på, at storskarv på noget tidspunkt har været en handelsvare, der potentielt set kunne have gået i østlig retning.
Der er altså ikke meget, der sandsynliggør, at mellemskarvens forekomst vest for den store centralasiatiske spredningsbarriere skulle være naturlig. Omvendt er det let at argumentere for at asiatiske mellemskarv til fiskeri kan være indført til Europa enten via direkte import (Olburs 2008) eller som diffus gradvis spredning via menneskelig hjælp, som skitseret ovenfor. Ja – faktisk forekommer det næsten usandsynligt, at en for europæere så opsigtsvækkende genvej til flere elitære statussymboler over en periode på så mange år ikke skulle være importeret til Europa på en ene eller anden måde – præcis som andre asiatiske fuglearter som fx fasan og påfugl er fragtet vestpå.

Om sommeren er det primært mellemskarv der yngler i Danmark, men over efteåret er der et kæmpe skarvtræk fra de omkringliggende lande i Danmark og senere på vinteren også mange overvintrende fugle nordfra, hvoraf en del er storskarv.
Marcus Beike beviser ikke, at Christer Olburs tese om indførsel af asiatiske mellemskarv er forkert
Olburs teori (2008) gik altså ud på, at europæiske søfarere i 15-1600-tallet – havde indført kinesiske fiskeskarv til Holland, hvorefter skarvfiskeri – fiskernes ”UV-falkonerjagt” – bredte sig som en gentlemansport blandt de europæiske eliter og hoffer op gennem 16-1800-tallet – hvilket via fx undslupne fugle oplagt kunne have været ophavet til den europæiske bestand af mellemskarv.
Årstallet og plottet passer godt med, at dette kunne være sket i kølvandet på Vasco Da Gamas opdagelse af søvejen til Indien i 1498, og at Jorge Álvares i 1513 havde indført direkte ruter for skibshandel til Kina. Men – selvom plottet er oplagt, fik Christer Olburs teori aldrig rigtig gennemslagskraft – nok især fordi tyskeren Markus Beike (2024) mente at tilbagevise Olburs teori.
Beike hverken beviser eller sandsynliggør, at mellemskarven er hjemmehørende i Europa
Marcus Beike havde bl.a. følgende tre hovedkritikpunkter: 1) At der ikke var konkret bevis for en specifik dokumenteret transport på det rette tidspunkt i forhold til hans teori, hvilket er korrekt, efter som der p.t. først eksisterer en skriftlig beretning om en konkret vellykket fragt af kinesiske fiskeskarv fra Asien til Europa i 1880 (Gudger 1926). 2) At de hollandske fiskeskarv i virkeligheden stammede fra engelsk indfangede og derefter trænede fiskeskarv (Beike 2014), som i princippet meget oplagt kunne have været storskarv. 3) Beretninger fra middelalderen i 840 og 990 (første skarvbeskrivelse i europæisk natur) samt 12-1500-tallet med den første europæiske ynglebeskrivelse i 1377, indikerede i hans optik, at der allerede var ”mellemskarv” i Europa før det tidspunkt Olburs argumenterede for, at den kunne være indført: ”The analyses show that there is no evidence for the introduction of birds from China. Instead, a medieval breeding record as well as regular appearance of the cormorant in religious and secular literature from the middle ages show that the bird was at least temporarily well-known in deeper inland regions of the german speaking area. The results raise strong doubts about the hypothesis of Phalacrocorax carbo sinensis being an introduced species, konkluderede han.
Denne konklusion er af mange (fejl)tolket som et bevis for, at mellemskarven skulle være en oprindeligt hjemmehørende fugl i Europa. Fakta er dog, at Beike (2014) ikke beviser noget, fordi det eneste han reelt kommer frem til, det er, at der ikke indtil videre er fundet dokumentation for en specifik transport af kinesisk mellemskarv til Europa, hvilket ikke er et bevis for, om det var mellem- eller storskarv, der var i Europa på det tidspunkt. De omtalte skriftlige kilder på europæiske skarv i den centraleuropæiske middelalder hverken dokumenterer eller sandsynliggør, at det skulle have været mellemskarv, eftersom 1) den blev først defineret som underart af Blumenbach i 1798 mange hundrede år efter og 2) beretninger om trærugende skarv er ikke et bevis for, at det rent faktisk var mellemskarv eftersom a) det ikke er en konservativ karakter i en evolutionær sammenhæng, b) der er eksempler på, at begge underarter kan bygge rede både på jord, klipper og i træer (Brown 1935, Berrow et al. 2024 m. fl.) – og c) En teori om gradvis spredning gennem Europa på grund af udkonkurrering sandsynliggør desuden, at det vi i dag ser som storskarvens nuværende primære ynglehabitat især på klipper, blot kan være resultatet af, at mellemskarven over tid har fortrængt storskarven nordvestover tilbage til det atlantiske område, hvor klipper rent lavpraktisk er en af de mest oplagte, sikre og almindelige potentielle redehabitater tæt på kysten.
Hvis man undlader Marus Beikes personlige tolkninger, er ingen af de faktuelle oplysninger i hans artikler dog i konflikt med en teori om, at mellemskarv af asiatisk herkomst kan have spredt sig op igennem Europa og gradvist fortrængt storskarven måske på en periode på over 500-1.500 år.

En voksen skarv æder i snit cirka et halvt kilo fisk om dagen – og er heldt vild med fx aborrer, som du ser her. Foto: Adobe Stock
Direkte eller diffuse spredningsteorier for mellemskarv fra Asien til Europa ikke i modstrid
De to skitserede modeller for menneskelig spredning af asiatiske mellemskarv til Europa – enten diffust eller direkte – er som sådan ikke i konflikt, og den ene udelukker ikke den anden; selv om domesticerede asiatiske mellemskarv med stor sandsynlighed kan have været kommet til Europa via handel gennem mange år over en bred front af transasiatiske handelsnetværk, udelukker det ikke, at der samtidig også kan have været specifikke direkte transporter bestilt eller foretaget af europæere, hvor vi pt bare ikke har fundet dokumentationen for det endnu. Det første nedskrevne eksempel, som illustrerer dette, er en hollandsk udsending, der allerede i 1655-57 i Kina forsøger at købe en fiskeskarv (Gudger 1926). Ejeren ville i det tilfælde ikke sælge, men det er oplagt, at interessen for “fiskeskarv” har været der fra Europæisk side, og at der sagtens kan være historiske dokumenter, som beviser direkte fragt af fiskeskarv fra Kina til Europa, som enten er gået tabt eller bare pt ikke blevet opdaget endnu.
I takt med øget digitalisering af gamle dokumenter kombineret med hastigt forbedrede AI-oversættelser og søgninger på originalkilder fra Eurasien og Østafrika, hvortil mange af de maritime silkevejsruter også førte, er det ikke usandsynligt, at der i fremtiden kan dukke meget mere ny information frem, som kan kaste nyt lys over eventuel handel med fiskeskarv fra øst mod vest.
Silkevejen – diffus human spredning af mellemskarv fra Asien til Europa
Da skarvfiskeri som nævnt var helt almindeligt blandt fattige i hele Kina og asiatiske mellemskarv samtidig blev handlet vidt og bredt i alle Kinas provinser plus sikkert også mange andre steder i Asien, må der have været enorme mængder af domesticerede mellemskarv i fjernøsten – måske allerede fra 500-1.000 tallet eller langt før. Med så mange tamskarv samt heraf følgende mulighed for undslupne fugle, har de vilde bestande af mellemskarv i Asien sikkert også båret på mange domesticerede gener for ekvilibristiske, men kunstigt fremavlede superfiskeegenskaber.
Diffus spredning i tid og rum, hvor handel mellem nærliggende landsbyer har spredt domesticerede fugle eller gener båret af vilde fugle længere og længere vestpå, er derfor i min optik yderst realistisk. Det kan have foregået få kilometer af gangen – enten til fods eller med skarverne på en lille båd. Undervejs og over årene kan løsslupne tamfugle have blandet sig med vilde fugle – og etableret småbestande. Fugle herfra har måske været fanget ind og trænet igen, ført videre – og så videre, hvilket kan være sket kontinuerligt over mange hundrede eller måske over tusinde år. Det kan være sket via et utal af parallelle spredningsveje, forbundet med nogle af de NS gående handelsruter, der førte frem til hovedsporene af Silkevejen i højlandet: Herfra kan de oplagt være transporteret med menneskelig hjælp det sidste stykke langs Silkevejens mange forgreninger – oplagt til eksempelvis oaser og vådområder i Tadsjikistan, Kirgisistan og grænseområdet mellem Xinjian og Kasakhstan, hvor fuglene kan have kommet sig med rigelige mængder vand og fisk. Det kan både være sket fra de nordlige ruter samt via den sydlige Silkevej gennem Gangesdalen og op over Karakorum Passet ned til det samme område.
Netop en gradvis spredning via mennesker over kortere distancer har måske rent lavpraktisk været nemmere end lange uafbrudte transporter, da det selvfølgelig har været lettere at holde skarverne i live og god form med føde og vand, jo flere pitstops, der har været undervejs. He (2009) nævner dog, at især unge skarvers kost ofte blev suppleres med tofu, der har været en kendt spisevare i Kina i cirka 2000 år. Tofu kan således oplagt have været brugt til at holde skarverne i live på længere transporter, hvor netop lav vægt, plads og holdbarhed har været altafgørende. Det kan nemlig tørres, holde sig i helt op til et år – og derefter kvældes i vand, inden det spises. Netop disse egenskaber for tofuen kan oplagt have gjort det lettere at fragte skarv længere stræk gennem tørre områder, fordi man selv ved den mindste kilde, bæk eller oase uden fisk, vil have haft muligheden for at supplere foder eller fodre fuglene med kvældet lufttørret tofu, så de overlevede transporten.
Fra de centralasiatiske oaser og vådområder kan mellemskarverne enten være ført og handlet videre – og/eller have dannet vilde bestande fra undslupne fugle, der gradvis har spredt sig vestover gennem vådområdekorridorer kombineret med kortere flyvninger over tørre områder for at komme videre vestover de vestasiatiske stepper til nye attraktive levesteder. På den måde kan de asiatiske mellemskarv have været nået Det Kaspiske Hav – samt det, der meget vel kan have været østkanten den oprindelige storskarvs udbredelsesområde – repræsenteret ved subfossile skarvfund i Aserbajdsjan (Tyrberg 1998). En anden oplagt vej vestpå er landtransport kombineret med den maritime silkevejs mange mindre etaper der via Indiens og Mellemøstens havne gradvist kan have ført asiatiske mellemskarv til fx Det Røde Hav og Egypten – hvor den har ramt den oprindeligt sydøstlige udbredelse for storskarven, hvilket som nævnt er underbygget af Pleistocæne fund fra Egypten og Holocæne fund fra Saudi Arabien.

Der er i dag cirka 30.000 ynglende skarvpar i Danmark.
Mellemskarven indvandrer fra øst og erobrer Europa
Hvis teorien holder, og den asiatiske mellemskarv gradvist skulle have erobret Europa fra sydøst mod vest og nord som enten som ynglefugl og/eller resident, så må den asiatiske mellemskarv have haft en helt særlig trumf. For hvordan kunne den eventuelt være i stand til at udkonkurrere den noget større storskarv på sin vej vestover? Ofte er det jo sådan, at større dyr af samme type er dominante overfor mindre dyr af samme type. Svaret kunne oplagt ligge i, at man i måske over 2.000 år på kunstig vis har selekteret kraftigt for at fremavle de mest effektivt fiskende mellemskarv. Studier har da også vist, at en forøget fourageringseffektivt ikke overraskende giver bedre ynglesucces (Daunt et al. 2007) – og dermed oplagt også bedre mulighed for at ekspandere sin udbredelse ved at påføre storskarven hård interspecifik konkurrence.
Domesticerede mellemskarv i Asien var tvunget og dresseret til fange mange flere fisk end vilde fugle, fordi de først skulle fange konsumfisk til deres herre – og derefter byttefisk til sig selv og deres unger. He og Grémillet (2009) refererer baseret på omfattende kinesiske litteratur- og feltstudier, at skarven ofte skulle fange omkring otte fisk, før de selv fik én – og det var typisk en af de mindre. De kinesiske fiskeskarv har altså rent jagtmæssigt skulle præstere betydeligt mere end vilde skarv, som ”bare” skulle fange fisk til sig selv og deres unger. Præcis som med alle andre dyr, der er domesticeret af mennesket gennem årtusinder, har man selvfølgelig valgt de bedste mellemskarv til avl, hvorved man i hundredevis af generationer målrettet har selekteret for at give de asiatiske mellemskarv sine næsten overnaturligt effektive fiskeevner: Det kan oplagt have givet den de egenskaber, som efterfølgende kan have gjort dem i stand til at udkonkurrere storskarven.
Østersøen – da Storskarven forsvandt og mellemskarven overtog
Det udbredelsesmønster vi p.t. ser, hvor mellemskarven har rykket længere og længere vest og nordpå gennem Europa, stemmer godt overens med teorien om, at den asiatiske mellemskarv fra øst gradvist kan have erstattet den oprindelige europæiske storskarv, hvilket er i tråd med tidligere studier (Stevart 2002 samt Ericson og Carrasquilla 1997).
Sidstnævnte har på basis af store morfometriske studier af skarvknogler fra Østersøområdet kunne konstatere, at der i perioden op til 13-1500 tallet samt måske senere endnu senere – udelukkende var storskarv i Østersøområdet med det sidste dokumenterede fund vist på et maleri fra 1695 (Olburs 2008). Ericson og Carrasquilla kæder storskarvens uddøen sammen med, at saltholdigheden i Litorinahavet faldt: ”Maybe the salinity sank below some treshold value after 1500AD causing the P. c. carbo to cease breeding in the baltic. Simultaneously, the environment slowly transformed into that prefered by P. c. sinensis, which seems to have colonized the region soon after.” Det passer dog ikke godt sammen med palæosalinitets-modeller og proxyværdier for saltholdigheden i Østersøen i samme epoke (Westman et al. 1999). De viser nemlig, at saltholdigheden har været den samme i Østersøen siden 500-tallet, og selv da den toppede i Østersøen cirka 5.000-6.000 BP, har den ikke har været for høj til en mellemskarv, hvis man fx kigger på, hvor den normalt yngler og fouragerer nu – både i Atlanten og ved oceanisk saltholdighed i Kina. Så mellemskarvens eventuelle konkurrencefordel over for storskarven er næppe relateret til lavere saltholdighed, da man i givet fald ville forvente stigende procentdel mellemskarv i knoglefundene op igennem Subboreal (5.000-2.500 BP) og Subatlantikum (2.500 BP) op til mellemskarven overtager dominansen som ynglefugl i Østersøområdet, hvilket jo ikke er tilfældet. Hvis saltfaktoren vitterlig var en afgørende faktor for de to skarvunderarter, forekommer det også mærkeligt, at storskarven tilsyneladende den dag i dag har det fint med at overvintre og fouragere i selvsamme saltholdighed, som de forlod i tidligst 13-1500-tallet – måske først helt hen i 17-1800 tallet. Det kunne tyde på, at overgangen fra oprindelig storskarv i Østersøområdet til gradvist øget dominans af mellemskarv fra omkring 17-1800-tallet på gydepladserne, i virkeligheden skyldes andre faktorer – eksempelvis, at det ”tilfældigvis” er netop dette tidspunkt, hvor mellemskarven i sin gradvise erobring nordpå gennem det europæiske kontinent er kommet frem til Østersøen.
Mellemskarven blev første gang registreret i Danmark, Sverige, England, Finland, Baltikum og Norge fra 1800-tallet og frem til slutningen af 1900-tallet. At de første underartsbestemte eksemplarer af mellemskarv netop er fra disse år, siger ikke nødvendigvis så meget om det helt præcise ankomstår, men kan meget vel været et artefakt af, at mellemskarven først blev defineret som underart i 1798 – med efterfølgende stigende awareness om, hvorvidt det var den ene eller anden underart af skarv, der blev iagttaget. Selv med de bedste kikkerter nu til dags og med et trænet øje kan de to underarter været meget svære at kende fra hinanden.

Selv for trænede ornithologer er det svært at kende forskel på mellem og storskarv – og det er heller ikke muligt at kende forskel på enkelte knoglefund, fordi der er så stor forskel i størrelsen af han og hun – med et stort overlap imellem de to arter. Kun ved større morfometiske studier med et stort statistisk grundlag kan man udtale sig om hvilken art, der er tale om i et givent område.
Allopatrisk underartsadskillelse af skarv mere sandsynligt end sympatrisk
I dag lever de to underarter storskarv og mellemskarv sympatrisk i Europa – dvs i samme område uden en impassabel naturlig geografisk spredningsbarriere. Antager man, at mellemskarven vitterlig var oprindelig i Europa og havde været her i fx hundredetusindvis af år, så ville vi også skulle kunne forklare opretholdensen af underartsadskillelsen over tid ud fra noget – eksempelvis præferencer for forskellige habitater.
Hvis salt/kyst vs fersk inlandshabitat var præmissen for en underartsadskillelse af mellem- og storskarven, ville vi også forvente: 1) Dannelse af to lignende sikre og lige så forskellige underarter i Kina. 2) Hvis stor- og mellemskarv vitterlig havde sameksisteret naturligt i Europa i fx hundredetusinder af år – stabilt opretholdt som underarter over tid og kun adskilt af nichedelingen mellem salt og ferskvandspræference – så ville vi forvente, at arterne ikke hybridiserede, men derimod bevægede sig væk fra hinanden genetisk. Begge dele er ikke tilfældet idet: 1) Der er kun én sikker underart i Kina – nemlig mellemskarven, der både findes inde i landet i ferskvand og langs de østasiatiske kyster, hvor den fouragerer i områder med en saltholdighed op til 30-40 promille (Huang 2025). ”Underarten” Japanese great cormorant – Phalacrocorax carbo hanadae, som er nærmest identisk med mellemskarven, er normalt slået sammen med mellemskarv som sinensis/hanedae (EBird), eftersom der som antydet er uklarhed om, hvorvidt det rent faktisk er en underart. 2) Nye genetiske studier viser introgressiv hybridisering (Winney et al. 2000 og Grøndahl og Johnsen 2024) mellem stor- og mellemskarv i Norge og Storbritannien, hvilket ikke bidrager til at opretholde underarterne, men snarere at udvande dem over tid. Grøhndahl og Johnsen (2024) konkluderer således: ”Our results suggests that geneflow is more common from sinensis into carbo than vice-versa…”
Det øjebliksbillede, som vi ser i 2026, med hovedparten af mellemskarverne på fastlandet samt ved ferske- og brakvandsområder samt majoriteten af storskarverne langs Atlanterhavskysterne, kan altså blot være et artefakt af, at den østlige mellemskarv ved menneskets hjælp har ekspanderet vestover samt V og NV på gennem Europa via interspecifik konkurrence.
Mellemskarven – ikke-hjemmehørende og invasiv i Europa?
Med afsæt i den nuværende viden om skarven tyder alt i min optik p.t. på, at der er langt større videnskabeligt baseret evidens for, at den europæiske mellemskarv er ikke-hjemmehørende og oplagt invasiv – end der er for, at den skulle være oprindeligt hjemmehørende.
En endelig afklaring af mellemskarvens spredningsmønster og status som hjemmehørende eller ikke-hjemmehørende i Europa kræver et omfattende genetisk studie – optimalt set med aDNA på subfossile fund af skarv i hele Eurasien samt DNA-tests på nutidige skarv fra hele udbredelsesområdet. Men – det er næppe simpelt, for hvor eventuel målrettet import af asiatiske mellemskarv, som foreslået af Olburs (2008), sikkert vil vise en genetisk flaskehals, så vil en mere diffus human-medieret spredning over en bred front i tid og rum sandsynligvis give et langt mere udvandet genetisk billede.
Indtil mellemskarvens spredningshistorik er endeligt afklaret med DNA analyser, kan der forvaltningsmæssigt argumenteres for et forsigtighedsprincip, hvor konsekvensen p.t. bør være en kraftig regulering af mellemskarven i hele Europa, så den 1) kommer ned på et bestandsniveau, der hverken sætter den sandsynligvis oprindelige storskarv i fare for irreversibel genestisk forurening/udvanding og 2) ikke påvirker eksisterende hjemmehørende og især sårbare fiskearter negativt. Dette – samt spørgsmålet om, hvorvidt EU’s Fugledirektiv bør revideres, og hvorvidt skarven rent forvaltningsmæssigt bør katerogiseres som invasiv – er omdrejningspunktet for den tredje og sidste artikel i serien, der kommer snart på fiskogfri.dk.
LITTERATUR, DER BELYSER MELLEMSKARVEN SPREDNINGSHISTORIK:
Beike, M: “The history of Cormorant fishing in Europe”, Die Vogelvelt 133: 1-21 (digital engelsk version), 2012.
Beike, M: “Phalacrocorax carbo sinensis in Europe – indigenous or introduced?” Ornis Fennica 91: 48-56. 2014.
Berrow et al: ”Cormorants Phalacrocorax carbo breeding in Special Protection Areas in the Shannon Estuary and adjacent waters”, Irish Birds 47: 1–8, 2025.
Bliedtner, M. et al: “Holocene Temperature Variations in Semi-Arid Central Mongolia—A Chronological and Sedimentological Perspective From a 7400-year Lake Sediment Record From the Khangai Mountains”, Sec. Quaternary Science, Geomorphology and Paleoenvironment, Vol. 10, 2022.
Boev, Z.N: “The Holocene avifauna of Bulgaria (A review of the orni-archeological studies)”, Historia naturalis bulgarica, 6, 59-81, 1996.
Boev, Z.N: “Fossil birds in the National Museum of Natural History, Sofia: composition, development and scientific value. Zool. Med. Leiden 79-3 (4), 35-44, 30-ix. 2005.
Bregnballe, T og Gregersen, J: ” Udviklingen i ynglebestanden af Skarv Phalacrocorax carbo sinensis i Danmark 1938-1994#, Dansk Om. Foren. Tidsskr. 89: 119-134, 1995.
Browne, T: “An account of birds found in Norfolk. In Sir Thomas Browne´s works, Vol. 4 (ed. Wilkin, S) 311-323, Pickering, London.
Bulleid, A., & Gray, S. G: “The Glastonbury Lake Village”. Glastonbury Antiq. Soc. 2: 632-637, 1911-17
Daunt et al: “Older and wiser: improvements in breeding success are linked to better foraging performance in European shags”, Functional Ecology, vol. 21,3. 2007.
Ericson, G, P og Carrasquilla, H: ”Subspecific identity of prehistoric Baltic cormorants Phalacrocorax carbo”, Ardea 85: 1-7. 1997
Galimova, D, N et al: “Bird Remains from the 5th – 17th Century AD Archaeological Sites in the Middle Volga Region of Russis”, International Journal of Osteoarchaeology, Int. J. Osteoarchaeol., 2024.
Grøndahl, F, A og Johnsen, A: ”Combining biometrics and genetics to distinguish two subspecies of the Great Cormorant Phalacrocorax carbo carbo and P. c. sinensis at an inland lake in southeast Norway. Ornis Norvegica 47: 25-40, 2024.
He, L og Grémillet, D: ”A review of the current knowledge and status of tame Great Cormorants Phalacrocorax carbo in China”, BirdingASIA, 12, 103-106, 2009.
Holt et al: ”An Update of Wallace’s Zoogeographic Regions of the World”, Science 339, p. 76. 2013.
Huang, S et al: “Long-term monitoring data inform conservation strategies for waterbirds in the abandoned tropical salt pans of Budai, southwestern Taiwan”, Global Ecology and Conservation, 62:e03736, 2025.
Liang, Q. et al: ”Subsistence strategies in the Late Neolithic and Bronze Age in Nenjiang River Basin: A zooarchaeological and stable isotope analysis of faunal remains at Honghe site, Northeast China. International Journal of Osteoarchaeology, 1–14. 2023.
Monchot, H:” Arabian Animal Remains from the Bronze Age to the Historical Period: a State of Research”, In Athirat: Journal of Ancient Atabia 2 (2026) 165–196, 2026
Nomokonova, T:” A 9,000 Year History of Seal Hunting on Lake Baikal, Siberia: The Zooarchaeologyof Sagan-Zaba II, 2015.
Olburs, C: “The chinese cormorant Phalacrocorax carbo sinensis Blumenbach 1798 – An attempt to understand a complex biological question”, 2008.
Stevart, J, R: “Sea-birds from coastal and non-coastal, archaeological and“natural” Pleistocene deposits or not all unexpected depositionis of human origin”, Acta zoologica cracoviensia, 45(special issue): 167-178, Kraków, 2002.
Tyrberg, T. ”Pleistocene birds of Palearctic – a catalouge”, 1998.
Wang et al, “Ancient DNA insights into Neolithic bone-tool use on the Tibetan Plateau, Journal of Archeologival Science , article 106183, Vol. 177, 2025.
Westman et al: “Salinity change in the Baltic Sea during the last 8,500 years: evidence, causes and models”, Oceanus Havsundersökningar, Göteborg, 1999.
Winney, B, J er al: “The subspecific origin of the inland breeding colonies of the cormorant Phalacrocorax carbo in Britain”, Heredity 86, 45-52, 2001.
Zeder, M & Spitzer, M: ”New insights into broad spectrum communities of the Early Holocene Near East: The birds of Hallan Çemi“,Quaternary Science Reviews 151(2):140-159, 2016.
NOTER
– Ericson og Carrasquilla (1997) nævner tre ”sinensis” knogler fra Bulgarien (3.000 BP), der er anvendt til at belyse, hvorvidt mellemskarven kan have ændret størrelse over tid. Disse dokumenterer dog ikke oprindelig mellemskarv i Europa, fordi sikker bedømmelse kan kun ske ved større morfometriske studier som afklaret i del 1, hvilket sandsynligvis også er årsagen til, at man i ingen bulgarske subfossile samlinger finder Phalacrocorax carbo knogler bestemt på underartsniveau (Boev 1996 og 2005).
– Beike (2014) argumenterer for, at et skarvfund inde i Europa (Brehm, 1824) senere identificeret af Claud B. Ticehurst (1923) var identisk med Blumenbachs typeeksemplar af sinesis. Diskussionen om hvorfor mellemskarven har fået underartsnavnet sinensis, der betyder ”den kinesiske skarv”, er i min optik baseret på anekdotisk tvetydighed, der er svær at konkludere noget ud fra. Oprindelsen til navnet sinensis er reelt uden betydning – idet der er så god evidens for, at den kan have spredt sig ved menneskelig hjælp til Europa på flere forskellige måder – uanset hvad dens latinske navn er.
sep 3, 2026 | Artikler, Miljø og debat, Nyheder
Forvaltningsgrundlaget for mellemskarven i Danmark er, at den er en oprindelig del af den danske natur. Forestil dig, at der faktisk slet ikke er dokumentation for dette – men derimod bedre evidens for det modsatte? Meget tyder på, at det kan være tilfældet, hvilket potentielt set kan ændre fundamentet og præmissen for skarvforvaltningen i sin grundvold. Læs hvorfor i denne artikelserie.
AF JENS BURSELL, BIOLOG, FOTO JENS BURSELL OG LARS LAURSEN
HJEMMEHØRENDE ELLER EJ? Indenfor naturbevarelse er disse begreber helt centrale. Årsagen er, at det er altafgørende for den grad af beskyttelse, som en art kan forvente at få – eller omvendt, fordi en art pr. definition ikke kan kaldes invasiv, hvis den er hjemmehørende (Ministeriet for Grøn Trepart). For mellemskarvens vedkommende, er lige præcis denne diskussion helt essentiel at tage. Her kan man nemlig dokumentere de store biologiske (Jepsen, N et Al, 2014; Jepsen, N et Al, 2026; Fiskepleje.dk), biodiversitetsmæssige (Verliin et Al, 2026) og økonomiske skader (FAOTU, 2026), som arten kan forvolde naturen og samfundet, men samtidig have svært ved at handle på det, fordi den ifølge forvaltningsgrundlaget er hjemmehørende, hvormed den pr. definition ikke kan være invasiv.
Uden en revideret skarvdiskussion, hvor der tages højde for de emner og nye vinkler på skarvdebatten, som artiklen (del 1-3) her belyser, diskuterer hverken naturelskere, fagfolk, forskere, interessenter, politikere, embedsværk eller forvaltningen på et oplyst grundlag.
Hele den danske og europæiske skarvdiskussion drejer sig om arten skarv (Phalacrocorax carbo), der inddeles i to underarter, som på dansk hedder storskarv (Phalacrocorax carbo carbo) og mellemskarv (Phalacrocorax carbo sinensis). Det er især sidstnævnte – altså underarten sinensis, som udgør et massivt problem for de danske og europæiske fiskebestande (EIFAAC, 1925).
Skarver flyder typisk op til 20 kilometer væk fra deres reder efter føde – men kan jage betydeligt længere væk også.
Er mellemskarven hjemmehørende i Danmark?
At afklare de reelle forhold omkring mellemskarvens autenticitet i Danmark er ikke – som nogen måske betragter det – en kamp mod naturen, men derimod rettidig omhu, for at sikre bedre natur, sunde, naturlige dyrebestande samt en højere biodiversitet i Danmark generelt. Men nu til sagens kerne.
Der er normalt fire-fem logiske niveauer af dokumentation, når man diskuterer, hvorvidt en art er hjemmehørende – samt hvordan man ud fra en evidensbaseret forvaltning skal lovgive om en arts beskyttelse – eller eventuelt det modsatte:
- Hvad viser kvartærzoologien om jordfundne subfossiler, som eventuelt dokumenterer en oprindelig tilstedeværelse i et givent område?
- Hvad siger genetiske aDNA studier på fx subfossile knogler om artens udbredelse gennem tid og rum? Og findes der nutidige DNA analyser, der belyser diskussionen?
- Hvad viser kvartærzoologien om subfossiler og fossiler, som dokumenterer artens tilstedeværelse og spredning på verdensplan i forhistorisk og historisk tid?
- Er der historisk dokumentation – tekster eller afbildninger, der evt verificerer eller bidrager med evidens for artens tilstedeværelse og spredning?
- En sammenfatning hvor man ud fra et evidensbaseret udgangspunkt, vurderer hvilken status, man vil give arten som enten hjemmehørende, ikke-hjemmehørende og eventuelt invasiv.
At sammenstille den tilgængelige viden samt vurdere gamle og nye hypoteser, der belyser mellemskarvens autenticitet – eller mangel på samme – i Danmark samt resten af Europa, er en kompleks og omfattende diskussion. Jeg har derfor valgt at opdele artiklen her i tre dele. Den første beskæftiger sig med, hvorvidt det kan dokumenteres, om skarven er oprindeligt hjemmehørende i Danmark med afsæt i enten subfossile fund eller dokumentation baseret på DNA (1-2). Den anden del af artiklen fokuserer på, hvordan kvartærzoologiske fund set i et historisk, zoogeografisk og spredningsmæssigt perspektiv belyser autenticiteten af mellemskarv og storskarv i Danmark og Europa (3-4). Del tre er en sammenfatning af, hvad der samlet set taler for og imod skarvens status i Danmark som enten hjemmehørende, ikke-hjemmehørende eller invasiv art (5).
Ingen kvartærzoologisk dokumentation for oprindelige mellemskarv i Danmark
Trin 1 er at faktatjekke, hvorvidt det kan dokumenteres, om der oprindeligt har været mellemskarv i Danmark:
Jeg har talt med Anne Birgitte Gotfredsen, Ph.d og seniorforsker fra Globe Institute, Københavns Universitet, som i en årrække har studeret jordfundne (subfossile) fugleknogler fra danske og grønlandske forhistoriske aflejringer især fra perioden efter seneste istid.
Storskarven og mellemskarven ligner hinanden ekstremt meget både i størrelse og morfologi – samt har en så stor kønsdimorfi (han størst og hun mindst), at det er umuligt at se forskel på knoglerne fra en storskarv hun og mellemskarv han. Derfor var det oplagt at stille Anne følgende spørgsmål: Er det muligt med 100 % sikkerhed at adskille fund af mellemskarv fra fund af storskarv? Kan man eksempelvis med sikkerhed kende en voksen mellemskarv hun fra en ung storskarv hun?
– Det er ikke muligt med sikkerhed at skelne alene på knoglerne, hvis man har en enkelt knogle, svarer hun. – Har man mange måltagne knogler kan man lave statistik på det og bruge sandsynligheder, hvilket man har gjort i studiet ”Subspecific Identity of prehistoric baltic cormorants Phalacrocorax carbo af Ericson og Carrasquilla fra 1997” (RED: Her konkluderes det, at alle fund i Østersøområdet er storskarv og ikke mellemskarv, men den vender vi retur til flere gange). Vi har ikke lavet en lignende biometrisk undersøgelse på danske fund.
– Vi har et par stykker, som vi mistænker for at være fra c.sinensis– men det er forholdsvis små knogler og ikke sikre bestemmelser, som ikke er tjekket via aDNA. De drejer sig om en tibiotarsus (RED: knogle fra fuglens ben) fra en jernalderboplads Åsum på Fyn og en humerus (RED: knogle fra fuglens vinge) fra Trørød ved Vedbæk fra bronzealder/jernalder. Hvis eventuel indvandring/indførelse af mellemskarv skal belyses ud fra knoglefundene skal et større genetisk studie til, da morfometri alene ikke kan besvare spørgsmålet. Især vil middelalder- og renæssancefund være spændende at inddrage (læs mere om genetiske undersøgelser nedenfor).
Allerede her står det klart, at der p.t. ingen dokumentation er for, at mellemskarven skulle have været en oprindelig dansk fugl siden stenalderen. Men – vi kan jo lige så godt få en snak med en af Danmarks førende og Europas mest citerede skarvforskere – biolog Thomas Bregnballe, seniorforsker på DCE-Institut for Ecoscience, Aarhus Universitet. Thomas har været ankermand i flere af de største skarvstudier i Danmark – blandt andet kernereferencen på mellemskarv i Danmark – ”Udviklingen i ynglebestanden af Skarv Phalacrocorax carbo sinensis i Danmark”.
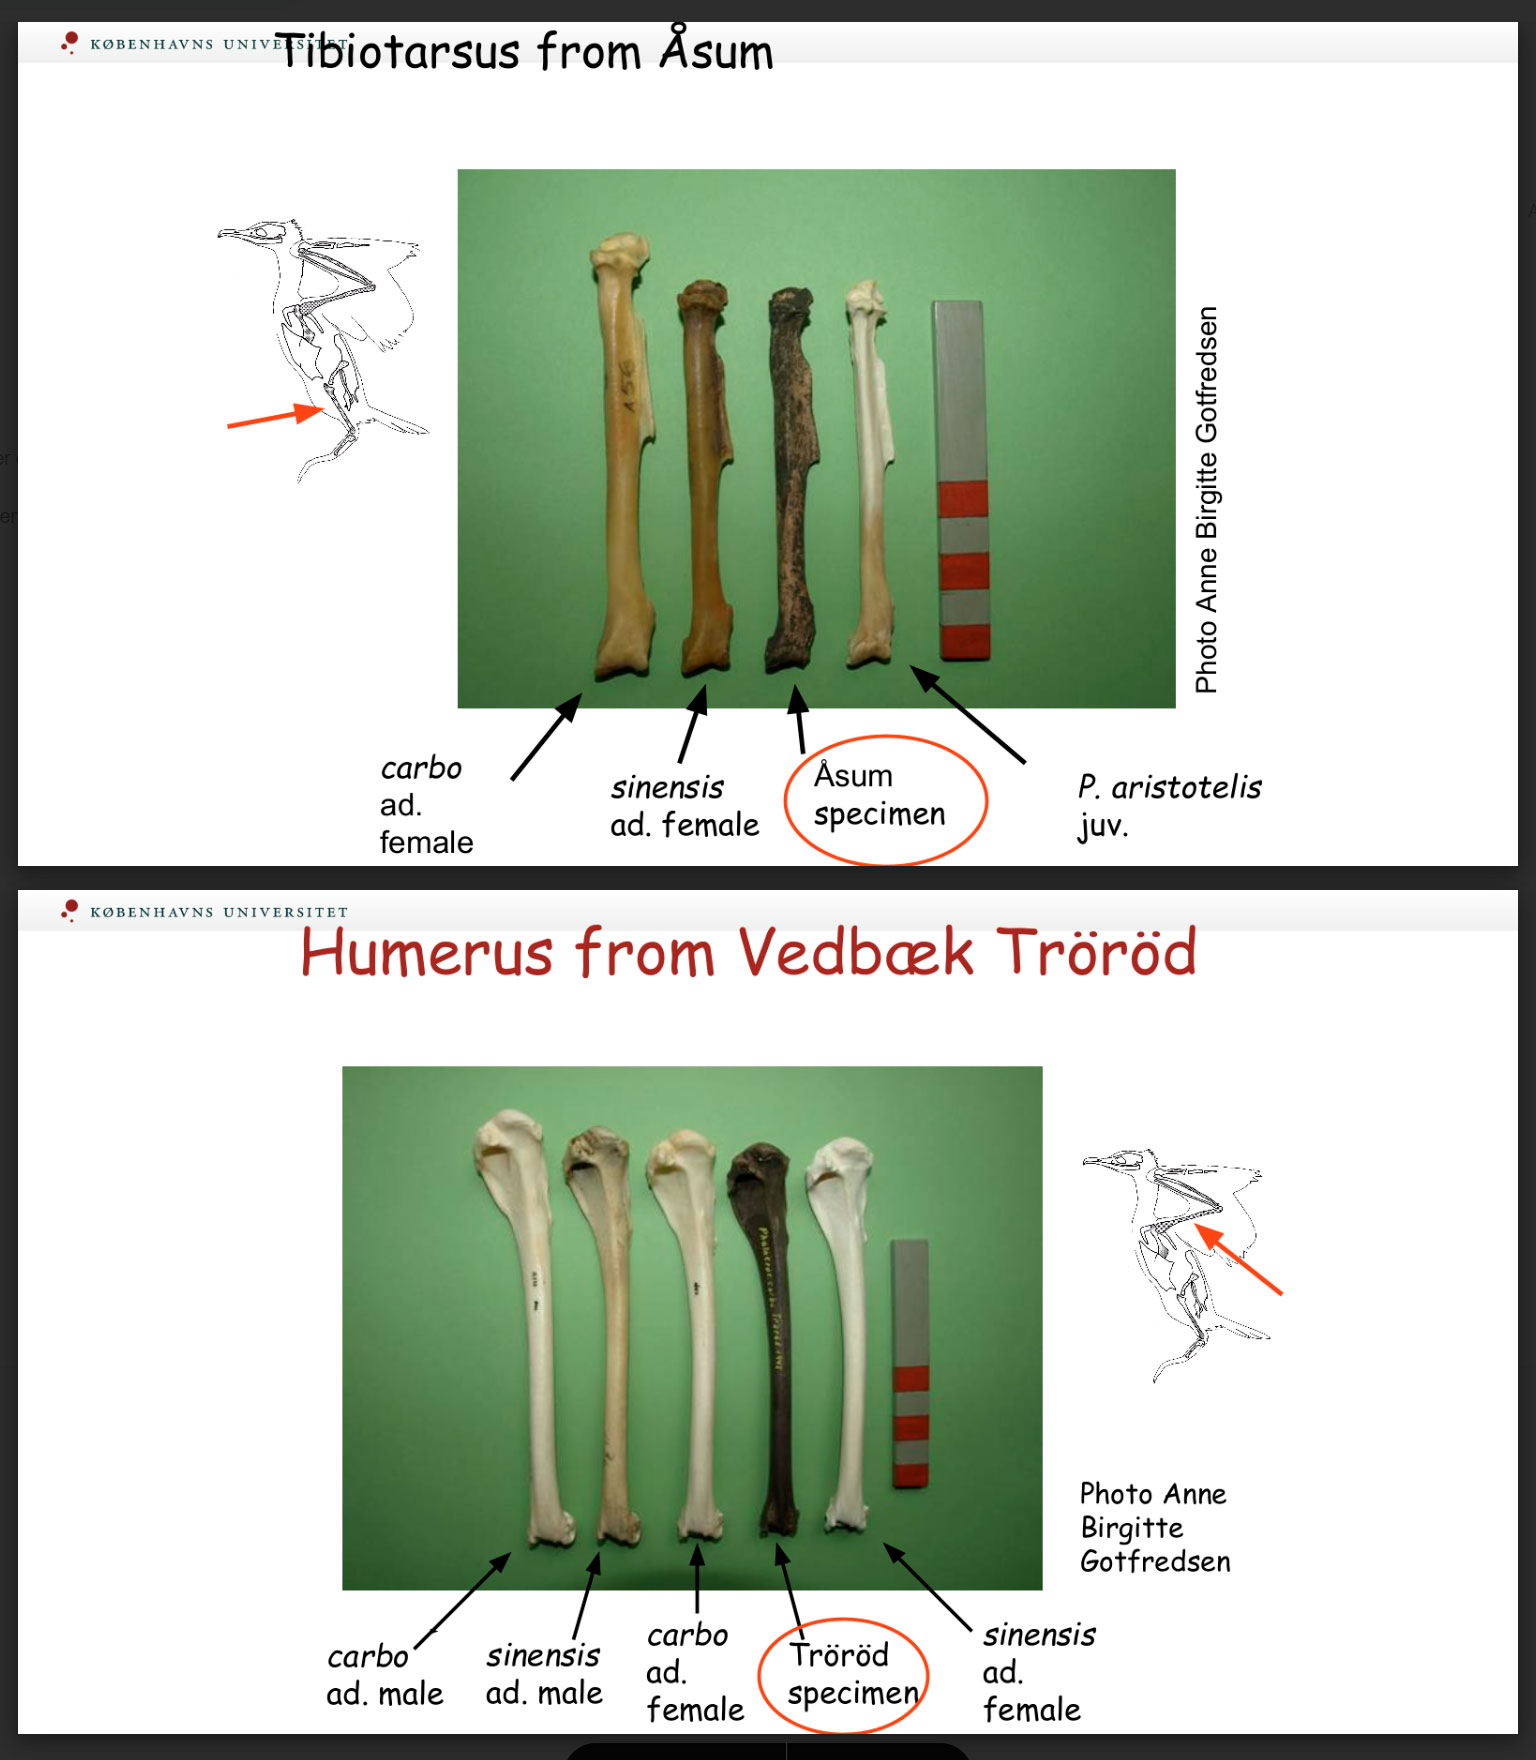
Bronze/Jernalderfund af skarvknogler fra Dannmark, hvor en sikker identifikation krærver enten store morfometriske undersøgelser baseret på mange individer – eller et aDNA studie. – Selvom de to eksemplarer virker små, kan vi som nævnt ikke være sikre på om der er tale om mellemskarv, siger kvartærsoolog Anne Birgitte Gotfredsen. Slide: Kristiina Mannermaas.
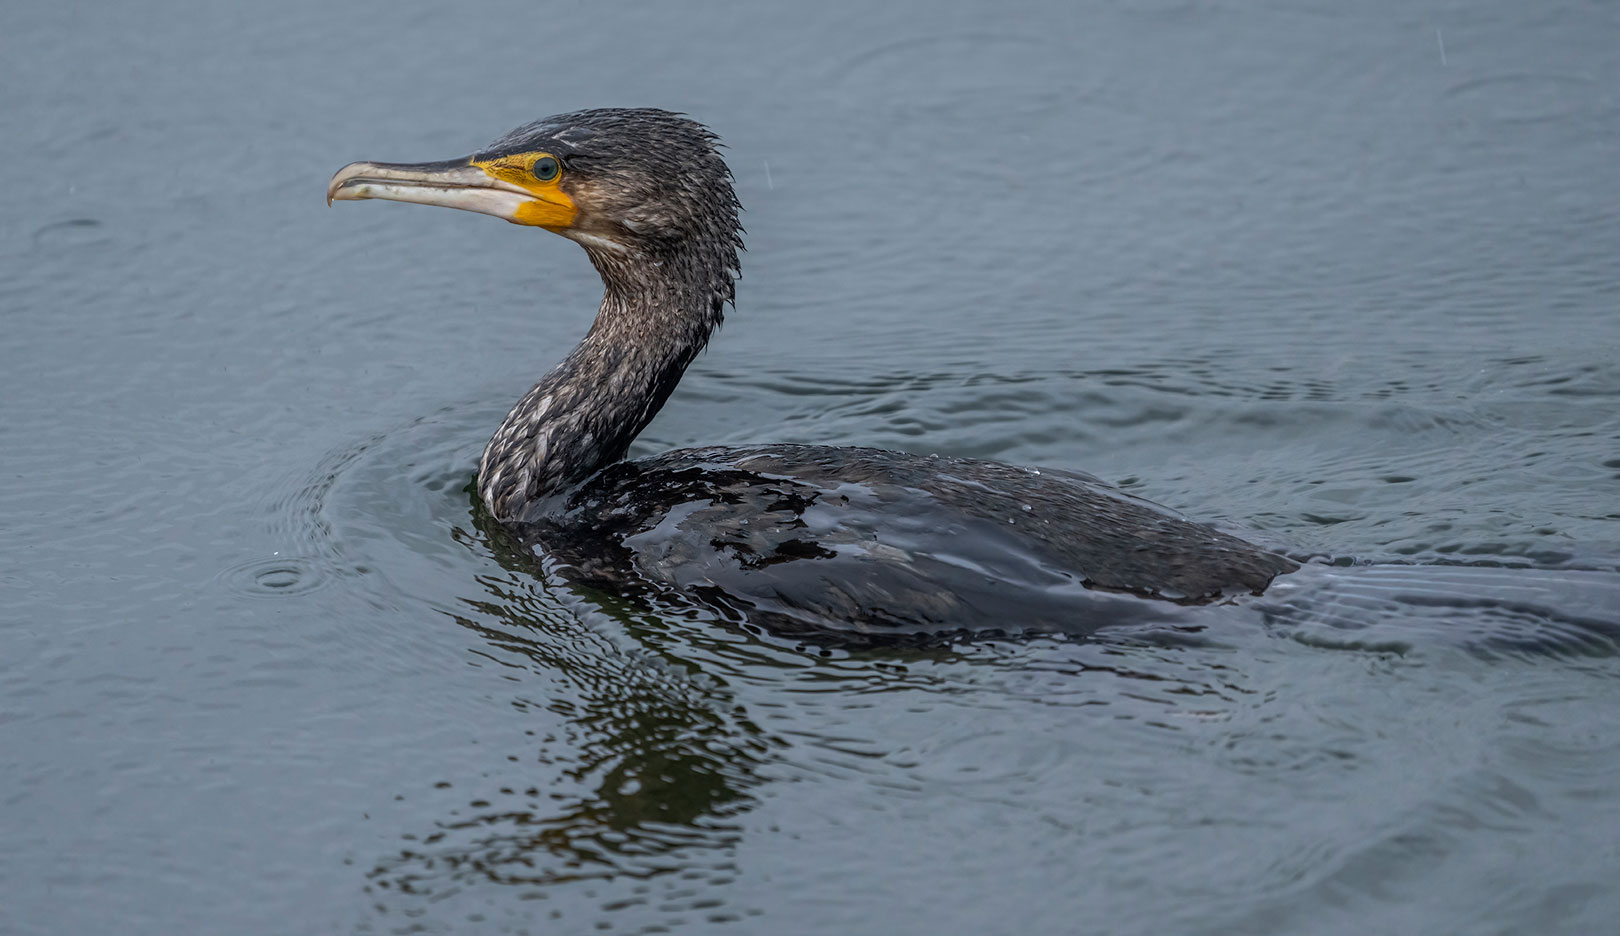
Skarven er en fantastisk jæger, der dykker og fanger fisk med stor ekvilibrisme.
Hvad siger skarvforskeren Thomas Bregnballe?
Da jeg løb igennem Bregnballes kilder til studiet fandt jeg intet, der efter nutidige metoder og standarder gav sikker dokumentation for en naturlig forekomst af mellemskarv i Danmark. Derfor har jeg stillet ham følgende spørgsmål:
I jeres studie “Udviklingen i ynglebestanden af Skarv (Phalacrocorax carbo sinensis) i Danmark 1938-1994″ skriver du sammen med din medforfatter Jens Gregersen at “For fuldstændighedens skyld gives her et resume af udviklingen før Skarvens genindvandring i 1938, baseret på oplysninger givet i litteraturen (Helms 1940, Madsen 1946, Sparck 1952, Løppenthin 1967, Coomans de Ruiter 1966, Hansen 1980, Knief & Witt 1983). De to underarter sinensis og carbo har antagelig optrådt i Danmark gennem de sidste 7000 år. Knoglerester af begge er fundet i køkkenmøddinger fra (især) yngre stenalder. Fra midten af 1500-tallet har vi skriftlige vidnesbyrd om ynglende Skarver i Danmark (formodentlig sinensis). Tilsyneladende ynglede Skarven ikke i landet gennem en længere periode i 1700-tallet, men omkring 1775 indvandrede den igen”.
Som læser af dit studie opfatter jeg – og nok også mange andre, dette som om, at du på basis af “(Helms 1940, Madsen 1946, Sparck 1952, Løppenthin 1967, Coomans de Ruiter 1966, Hansen 1980, Knief & Witt 1983)” selvom du også bruger ordet “antagelig” – i 1995 sluttelig konkluderer at: “Knoglerester af begge er fundet i køkkenmøddinger fra (især) yngre stenalder”. Implicit skriver eller signalerer du dermed – så vidt jeg kan se – at mellemskarv dokumenterbart er en oprindelig dansk siden yngre stenalder art baseret på disse knoglefund, hvilket måske kan have givet anledning til misforståelser. Ud fra hvilke af de refererede studier (Helms 1940, Madsen 1946, Sparck 1952, Løppenthin 1967, Coomans de Ruiter 1966, Hansen 1980, Knief & Witt 1983 ( – eller andre studier du er stødt på)) konkluderer I i 1995, at “Knoglerester af begge er fundet i køkkenmøddinger fra (især) yngre stenalder”?
– Jeg har desværre ikke med kort frist mulighed for at finde og gennemgå eksisterende publikationer, som fremlægger beskrivelser af knoglerester fra skarver fundet i køkkenmøddinger, svarer Bregnballe.
Er der sikker dokumentation for, at mellemskarven (sinensis)er en oprindelig dansk fugl baseret på a) Kilderne i ovennævnte studie publiceret i 1995 vedrørende fund fra køkkenmøddinger b) andre videnskabelige studier eller ny viden, du er bekendt med, der er kommet frem før eller siden 1995?
– Nej, jeg er ikke p.t. bekendt med, at der ud fra fund af knoglerester i køkkenmøddinger findes dokumentation for, at mellemskarven dengang ynglede i Danmark. Derimod tyder de studier, som jeg kender til, at vi dengang havde storskarver ynglende her i Danmark.
Har du lyst til at uddybe din konklusion?
– Det vil være relevant at få gennemgået litteraturen. Da der er overlap i knoglestørrelserne for de to underarter, kan det være vanskeligt at skelne mellem de to underarter udelukkende ud fra opmåling af knoglerester. Men jeg mener at kunne huske, at den danske zoolog Ulrik Møhl, der målte på skarvknogler fundet i køkkenmøddinger, nåede frem til, at de fundne knogler sandsynligvis stammede fra skarver tilhørende underarten storskarv. Jeg husker, at svenske forskere publicerede en artikel i 1997, hvor de ud fra mange opmålinger af knoglerester fra forhistorisk tid (repræsenterende mange svenske lokaliteter) fandt frem til, at det frem til 1500-tallet eller senere var storskarver, som levede i Sverige, hvorefter mellemskarven kom til (Ericson, G, P og Carrasquilla, 1997). Det vil være interessant at få undersøgt, om det via DNA-analyser er muligt at få belyst, om og hvor mellemskarven ynglede i Europa for 500-7.000 år siden. Som jeg vurderer det, ser det ud til, at det for 7.000 år siden var storskarven, som var tilstede her i det nordlige Europa, slutter Thomas Bregnballe.
Jeg er helt enig i Bregnballes betragtninger, eftersom det har været præcis det, som jeg har ræsonneret mig frem til på basis af samme litteraturkilder under researchen til denne artikel – og årsagen til, at jeg har rejst de spørgsmål, som du ser ovenfor. Alt tyder altså på, at der p.t. ikke er kvartærzoologisk dokumentation for, at mellemskarven skulle have været en oprindeligt hjemmehørende dansk art. Men hvad med genetikken?
Skarverne optræder ofte i flokke der kan variere i størrelse på til mange hundrede individer.
Ingen genetisk dokumentation for at mellemskarven er hjemmehørende i Danmark
Som nævnt ovenfor af Anne Birgitte Gotfredsen fra Globe Institute, er der med sikkerhed ikke foretaget aDNA analyser af danske subfossile skarvfund, hvormed der p.t. heller ikke er genetisk dokumentation for, at mellemskarven er oprindeligt hjemmehørende i Danmark.
Internationalt har jeg heller ikke kunnet finde nogle undersøgelser, der belyser oprindelsen af den danske og europæiske bestand af mellemskarv ift. fx asiatiske populationer. Peter Andrew Hosner, Associate Professor der er fuglekurator og kurator på Cryo-samlingerne under Statens Naturhistoriske Museum, KU, hvor der blandt andet opbevares genetisk materiale til biologiske studier, har heller ikke kunnet finde nogen.
Nul dokumentation for at mellemskarven er hjemmehørende i Danmark
Som skitseret ovenfor er der altså p.t. samlet set tilsyneladende hverken kvartærzoologisk eller genetisk dokumentation for, at mellemskarven skulle være en hjemmehørende art i Danmark. Men – det er dog som sådan ikke et bevis for, at mellemskarven ikke kan have været hjemmehørende her. Vi har bare til gode at få det bevist – eller modbevist. Hvad fremtidige studier baseret på aDNA, DNA og/eller mere omfattende knoglestudier vil kunne vise; det ved kun fremtiden.
For at sætte ovennævnte meget faktabaserede discipliner indenfor biologien i perspektiv, er det næste skridt selvfølgelig at dykke ned i det historiske; hvad er der af nedskrevne kilder, malerier og andet, der kan belyse mellemskarvens spredningshistorie – og dermed om den eksempelvis er hjemmehørende eller ikke-hjemmehørende samt måske endda kvalificerer til etiketten invasiv. Sidstnævnte vil rent forvaltningsmæssigt normalt medføre stram regulering eller decideret målrettet bekæmpelse.
Der findes masser af litteratur og undersøgelser fra hele Eurasien, der kan bidrage til at belyse sandsynlighed og evidens for, hvorvidt mellemskarven er indført til Europa og/eller Danmark ad menneskelig vej – eller bare er her helt naturligt.
Hvad det indikerer, når man kæder historikken sammen med resultaterne af eksisterende kvartærzoologiske undersøgelser samtidig med, at man sætter det i et bredt zoogeografisk og naturhistorisk perspektiv, er en meget interessant diskussion, som du meget snart får mit personlige bud på. Den kan du glæde dig til i del to af artiklen “Er mellemskarven hjemmehørende i Danmark?”.
Størstedelen af de danske skarver flyver sydpå om vinteren til fx Mellem- og Sydeuropa eller Nordafrika. En del af dem overvintrer dog også i landet.
Litteraturliste – skarv
Bregnballe, T og Gregersen, J: “Udviklingen i ynglebestanden af Skarv (Phalacrocorax carbo sinensis) i Danmark 1938-1994“, Dansk Om. Foren. Tidsskr. 89 (1995): 119-134, 1995
EIFAAC: “Framework for a European Management Plan for the Great Cormorant”, Food and Agriculture Organization og The United Nations, 2025
Ericson, G, P og Carrasquilla, H: ”Subspecific identity of prehistoric Baltic cormorants Phalacrocorax carbo”, Ardea 85: 1-7. 1997
Food and Agriculture Organization of The United Nations, “European inventory of fish damages caused by cormorant predation” , EIFFAC/OP60 (En), EIFFAC occational paper, ISSN 2221-6650.
Fiskepleje.dk, stalling
Jepsen, N. et Al: ”Betydningen af prædation på danske ferskvandsfiskebestande – en oversigt med fokus på skarv”, Institut for Akvatiske Ressourcer, Danmarks Tekniske Universitet, DTU Aqua-rapport 283-2014
Jepsen, N et Al: ”Cormorant predation on PIT-tagged cod and flounder in an open coastal system”, Fisheries Research 300, 107819, 2026
Ministeriet for Grøn Trepart, Styrelsen for Grøn Arealomlægning og Vandmiljø: ”De invasive arter”.
Verliin, Aa et Al: ”Loss of avian biodiversity on small Baltic islands after the establishment of Great Cormorant breeding colonies: revelations from a 62-year dataset”, Proc. R. Soc. B (2026) 293 (2071): 20253138 , 2026
NB: Dette er blot et udpluk af udvalgte kernereferencer
mar 14, 2026 | Artikler, Miljø og debat, Nyheder
I formiddags var en masse unge juniorer fra Hvidovre Sports- og Lystfiskerforening på Sydhavnstippen for at fiske havørred i selskab med Martin Lidegaard fra Radikale Venstre, der var kommet forbi for at få en snak om, hvad vi kan gøre for vores fiskebestande og havmiljøet.
AF JENS BURSELL, FOTO: JENS BURSELL & MATS SCHROETER
For få timer siden summede det af aktivitet og fiskeglæde på trods at en stille, kølig forårsregn på Sydhavnstippen. Og bedst som Martin var ved at fiske sig varm i det fjerde kast, blev der råbt FISK, da Alfred få meter fra ham krogede en smuk, blank havørred, som efter en kort fight gled i nettet til stor jubel fra de mange unge lystfiskere og deres forældre. En veltimet reminder på den fantastiske glæde en god fiske- og naturoplevelse giver vores unge – samt hvor vigtigt det derfor – også af denne grund – er at sætte fuldt fokus på at forbedre vores havmiljø.
Kort forinden fik vi en kort snak med Martin om udsigterne på en implementering af Fiskeriaftalerne fra 2025, hvor Radikale Venstre proaktivt – i samarbejde med Dansk Lystfiskeri og DSF – har katalyseret, at lystfiskeriet for alvor kom på dagsordenen på Christiansborg. Et arbejde der blandt førte til en – indtil videre uimplementeret – aftale om blandt andet stop for garnfiskeri i ferskvand, omsætningsforbud på gedde, aborre, sandart, laks og ørred – samt en række andre tiltag, der vil kunne få stor positiv betydning for lystfiskeriet i Danmark.

Det summede af forår og fiskeglæde på Sydhavnstippen idag, hvor Martin Lidegaard fra De Radikale Venstre besøgte Hvidovre Sports- og Lystfiskerforening til en gang havørredfiskeri. Nr 2,3 og 4 fra venstre er Martin Lidegaard, den glade havørredfanger Alfred Boding-Ipsen og Instagrammer Mats Schroeter.
Hvordan går det med omsætningsforbuddet på gedde, aborre, sandart, laks og ørred?
– Implementeringen af Fiskeriaftalerne går ikke hurtigt nok, siger han. – Jeg har rykket ministeren for det – og han har lovet at omsætningsforbuddet på sportfiskearterne skulle ske i første kvartal af 2026, men han siger, at det ikke er let på grund af den private ejendomsret på meget af fiskeriet i ferskvand. Nu er det jo ikke sikkert, at han stadig er minister på området om en måned, men jeg forstår det som om, at det er lige på trapperne. Jeg vil i hvert fald love at gøre mit for at holde dem fast på aftalen efter valget. Hvad angår nye fredninger i brakvandet foregår der pt en dialog omkring fritids- og lystfiskernes forskellige interesser.
– Næsten alle partierne var med i Fiskeriaftalen, og dermed er de også forpligtiget på den anden side af valget. Det er klart, at valget forsinker processen, og der kommer ikke til at ske mere, mens der bliver forhandlet regering, fordi embedsmændene ikke må arbejde videre med det, før der er kommet en ny minister, der kan tage styringen. Men – vi kan håbe på, at embedsværket har gjort tingene klar, så det går relativt hurtigt, når først ministerkabalen er lagt. Aftalen med lystfiskerne er krystal klar, mens der er andre dele af Fiskeriforhandlingernes resultater, der er lidt mere mudrede.
Et øget fokus på havmiljøet er vigtigt for fiskebestandene
– Men – vi snakker slet ikke nok om, hvad vi skal gøre for at forbedre vores havmiljø, fortsætter Martin. – Der er ingen tvivl om, at havmiljøet fylder alt for lidt i den her valgkamp, hvilket vi håber på at kunne rette op på. Til gengæld har der været meget fokus på drikkevand, hvilket vi mener er meget positivt. Vi kan nemlig ikke sidde med hænderne i skødet og vente på at Den Grønne Trepart realiseres, for det er en lang proces.

Der var varm kakao og fiskehygge i formiddag på Sydhavnstippen – i selskab med blandt andet Martin Lidegaard (tv) fra Radikale Venstre Mats Schroeter (midten) og Per Fischer fra Dansk Lystfiskeri, Havørred København og HSLF.
– Netop større krav til drikkevandet vil forhåbentlig kunne give en synergieffekt. Hvis vi får en regering, der ikke blot laver sprøjteforbud over drikkevandsreservoirer, men også sænker grænseværdien for nitrat i drikkevandet markant, vil det helt sikkert kunne føre til en kvælstofreduktion her og nu, hvilket relativt hurtigt vil kunne få en positiv betydning for vandmiljøet. Selvfølgelig vil hensynene til drikkevandet ikke løse de generelle vandmiljøproblemer, men vi vil kommet lidt nærmere – og betydeligt hurtigere end med den grønne trepart, som naturligvis også skal gennemføres, selvom det tager længere tid.
Færre svin vil øge dyrevelfærd og forbedre vandmiljøet
– Radikale Venstre har kommet med et forslag med udgangspunkt i dyrevelfærd, som skal give svinene betydeligt mere plads i Danmark, pointerer Martin. – Hvis vi får det gennemført, vil det føre til en halvering af den danske svineproduktion, hvilket – udover gladere grise – vil få stor positiv betydning for vores vand, fordi det vil bidrage markant til en nedsat udvaskning af næringsstoffer fra fx gylle. Hvad angår drikkevandet får vi støtte fra både de røde partier og Konservative. Hvad svinene angår får vi støtte fra de røde partier, og det ser også ud som, at Socialdemokratiet og Konservative er begyndt at støtte dette.
Flere trawlfri zoner skal gavne havmiljø og fiskebestande
– De to store presfaktorer på vores vandmiljø er dels forurening og dels trawlfiskeriet, understreger han. – Her vil vi gerne have forbud mod trawl udvidet op i Kattegat og også gerne sydpå ned mod Køge Bugt. Det håber vi at kunne finde et flertal for. Det er jo en tragedie, at der næsten ikke er flere torsk tilbage i vores indre farvande. Vi er jo begge fra en generation, hvor man kunne stå og fange masser af torsk fra stranden. Jeg er bange for, at vi mister torsken helt, hvis ikke vi stopper overfiskeriet med fx trawl i de indre farvande, slutter han, og tilføjer, at fiskebestandenes ve og vel samt den grønne omstilling generelt ligger hans hjerte meget nær. Det er noget, jeg vil tage med ind i regeringsforhandlingerne.
Læs om Hvidovre Sports- og Lystfiskerforening her.
Hør om Havørred København udsætningerne på stedet her i denne video.

dec 23, 2025 | Artikler, Miljø og debat, Nyheder, Predatorfiskeri, SANDART
De indfangene sandarter fra Arresø blev skånsomt opbevaret i dette store net i Ramløse Havn.
Sandarten er en af vores mest populære sportsfisk i ferskvand – og over de sidste par år er der kommet en gryende forståelse for, at vil vi have nogle bedre bestande af denne oprindeligt hjemmehørende danske art – så skal vi have gang i både bedre beskyttelse og støtteudsætninger, hvor det er nødvendigt.
AF JENS BURSELL
Fra 17-1800 tallet er der historisk vidnesbyrd om en bestand af sandart i sønderjyske Haderslev Dam – en bestand, der over de seneste år har været fåtallig. For et par år tilbage besluttede Sønderjysk Sportsfiskerforening sig for at gøre noget med den skrantende sandartbestand – og nu er der – med støttet fra Lystfisker Danmarks projektpulje til bedre lystfiskeri i Danmark, hentet 184 voksne sandart fra Arresø på Nordsjælland til at booste populationen.

Michael Røge fra Sønderjysk Sportsfiskerforening med en af de mange sandarter, der blev flyttet fra Arresø til Haderselv Dam i november.
Sønderjysk Sporfiskerforening og LF tager arbejdshandskerne på
– I weekenden d. 14-16 november var vi 16 lystfiskere, som drog til Sjælland for at opfiske sandart, som efterfølgende skulle udsættes i Haderslev Dam, lyder det fra Sønderjystk Sportsfiskerforening. Allerede torsdag aften mødte de første fiskere ind på Ramløse Havn ved søen, hvor Arresø Sejlklub havde været så venlige at stille deres klubhus til rådighed, hvilket var en kæmpe hjælp. Der havde vi så en base at arbejde ud fra – samt et sted at komme ind i varmen og lave mad til alle deltagerne.
– Vi havde allieret os med nogle lokale medlemmer af Lystfiskeriforeningen anno 1886 – alias LF, som også stillede både til rådighed. Ud over det havde vi også selv inviteret nogle skrappe prædatorfiskere, som mødte op med båd og udstyr til at finde og fange sandart.
Opfiskning af sandart i Arresø
– Fredag kl.08.00 var der skippermøde i sejlklubben. Vi fik lidt morgenmad, godt med kaffe og hilste på hinanden. Hver især fik man udleveret tilladelser, og et skema til at notere fangsterne. Og så var det ellers i gang med at fiske. Vi havde tilladelse til at flytte 200 sandart, og det mål ville vi gerne så tæt på som muligt. Efterhånden som de blev fanget, blev de transporteret ind til havnen i murerbaljer for derefter at blive sat i et stort udspændt netbur, hvilket fungerede rigtig fint. Forhåbningerne om at nå de 200 sandarter var dog ikke på det højeste, da der efter første fiskedag kun var fanget godt og vel 30 fisk.
– Om lørdagen skulle der for alvor fiskes igennem – med flest både og fiskere. Logistikken og opbevaringen var der styr på. Nu var det “bare” op til alle de dygtige fiskere at fylde fangstgården med sandart. Senere på dagen blev de første 65 sandart hentet, og fragtet til Haderslev Dam. Alle disse fisk overlevede transporten, og svømmede sikkert ud i deres nye hjem. Dagen løftede således forhåbningerne om at nå målet igen, da de dygtige fiskere fik det samlede antal op på over 120 sandart. Efter en lang dag på vandet, var der igen en lækker, velfortjent aftensmad i sejlklubben. Et slag “skomar”, en enkelt øl og en lille til halsen blev det også til.

Sandarterne fra Arresø blev transporteret ind til det store net i murerbaljer med iltet vand som disse.
Slutspurten i sandartfiskeriet
– Søndag var det atter tidligt op: Morgenmad, rigelig kaffe, og af sted på vandet igen. Nu skulle slutspurten sættes ind, og der blev fisket lige til det sidste, da vi sluttede fiskeriet klokken 13. Dem, der havde langt hjem, skulle vi have sendt af sted. Der skulle også ryddes op, og gøres rent. Og ikke at forglemme, så skulle de sidste sandart læsses samt sendes mod Jylland. Timingen viste sig helt perfekt. På trods af, at søen viste tænder i form af vind og bølger, da de første ankom torsdag, var vi så heldige, at søen lå stort set spejlblank alle tre dage – lige indtil de sidste forlod Ramløse søndag, hvor det igen begyndte at blæse op.
– Det samlede resultat endte på imponerende 186 sandarter, og søndag klokken 23 var de sidste sandarter sat ud i Haderslev Dam. Ud af de 186, var der to fisk, som ikke overlevede – én der døde fangstgården på Ramløse Havn, og en anden der blev angrebet af en mink på havnen, hvilket først blev opdaget ved ankomsten i Haderslev. Der er således nu udsat 184 sandart i Haderslev Dam, hvor størstedelen ligger på 55-65 cm. Der er blevet ydet en kæmpe indsats både i tiden op til, men også over alle tre dage – fra morgen til aften. Både af fiskerne, men ikke mindst fra landfolket, som har sørget for forplejning og brygning af spandevis af kaffe. Afslutningsvis vil vi gerne på Sønderjysk Sportsfiskerforenings vegne takke alle, som har bidraget til, at vi nåede i mål med projektet. Ingen nævnt, ingen glemt.
– For at give de udsatte sandarter i Haderslev Dam en optimal chance for at etablere sig i søen og forhåbentlig blande sig i genpuljen, er sandarterne i søen pt fredet på ubestemt tid, slutter foreningen.
Læs mere om Sønderjysk Sportsfiskerforening her.

Størrelsesfordelingen af sandaerter flyttet fra Arresø til Haderslev Dam af Sønderjysk Sportsfiskerforening.
maj 23, 2025 | Artikler, Miljø og debat, Nyheder, Sponsornyt
I efteråret 2025 lancerede Martin Lidegaard fra De Radikale Venstre i samarbejde med brancheforeningen Dansk Lystfiskeri og DSF et visionært oplæg til, hvordan man relativt simpelt kan skabe store forbedringer for det danske lystfiskeri. Efterfølgende har man arbejdet hårdt på, at hensynet til de danske fiskebestande og lystfiskeriet i Danmark skulle integreres i de fiskeriforhandlinger, der kører i 2025. Men hvordan går det så? Vi har talt med Martin Lidegaard.
AF JENS BURSELL
I DET OPRINDELIGE OPLÆG til forbedringer til fordel for det danske lystfiskeri valgte man indledningsvis at fokusere på følgende otte forholdsvis lavthængende frugter:
- Fokusere fiskeriforvaltningen i retning af lystfiskeriets potentialer, herunder et omsætningsforbud på gedde, aborre, sandart, havørred og laks fanget i Danmark, så disse arter alene kan fiskes af lystfiskere.
- Styrke lystfiskeriet gennem flere økonomiske ressourcer til Fiskeplejen.
- Øge indsatsen for begrænsning af skarvens pres for at genetablere sårbare fiskebestande.
- Pensionister fremover skal indløse det statslige fisketegn, og at flere af fisketegnsmidlerne går til fiskepleje.
- Opbakning til og udvikling af det frivillige engagement, som tusindvis af frivillige lystfiskere hvert år bidrager med.
- Sikre adgangsforhold for lystfiskere til den danske natur.
- Opprioritere det rekreative lystfiskeri i en række danske vandområder, blandt andet ved at ændre status og bekendtgørelser for brakke vandområder.
- Genetablere frie passager for de to store vandsystemer ved Gudenåen og Storåen.
Lystfiskeri på dagsordenen på Christiansborg
– Fra det øjeblik, hvor jeg startede med at snakke lystfiskeri på Christiansborg i efteråret og til nu, er der sket en stor og positiv udvikling, fortæller Martin Lidegaard. – Jeg vil faktisk sige, at det er lykkedes sammen med lystfiskerorganisationerne – at bære det her vigtige emne ind på Christiansborg. Der er nu en helt anden opmærksomhed på lystfiskeriet. Det er vigtigt at anderkende, at uden alt det frivillige arbejde fra lystfiskerne, så var der slet ikke noget lystfiskeri. Jeg synes derfor, at vi skal anerkende og give alle de lystfiskere, der har engageret sig i det her – et klap på skuldrene.

Søfiskeriet efter gedde, aborre og sandart er en af de ting som Martin Lidegaard isamarbejde med Dl og DSf vil beskuytte for erhvervsfiskeri.
Omsætningsforbud på sportsfisk som gedde, aborre, sandart, laks og ørred
– Både på grund af de mange vælgere, men også fordi der er kommet en erkendelse af, at i en situation, hvor der ikke er så mange fisk, så får vi nok mere ud af det ved at reservere nogle af få der er tilbage – fx gedder, aborrer, sandarter, laks og havørreder til at blive fanget på stang af lystfiskere og turister. Det vil både give både mere glæde og højere socioøkonomisk værdi for samfundet. Dette er en god nyhed. Spørgsmålet er så, hvor langt vi kan drive det i de igangværende forhandlinger. Jeg håber og tror, at der vil være en politisk forståelse for at tage disse fem arter ud af erhvervsfiskeriet. Faktisk var der allerede under forhandlingerne til Den Grønne Trepart positiv forståelse omkring dette blandt flere partier. Så det er et af de områder, hvor vi nu virkelig sætter trumf på, og håber på at det kan lykkes denne her gang.
Flere penge til lystfiskeriet
– Tilsvarende føler jeg, der er en øget forståelse for, at vi stimulerer alt det, der skal til for at gavne fiskebestanden med fx natur- og fiskepleje samt udsætninger. Vi kæmper også for, at alle skal betale lidt mere for deres fiskekort – også pensionisterne. Det er dog ikke nødvendigvis let at gennemføre, for det er der delte meninger om. Helt generelt arbejder vi for, at lystfiskeriet skal have flere penge at gøre godt med – eksempelvis efter krone til krone princippet: For hver krone lystfiskere lægger til et projekt – gives der det tilsvarende i tilskud fra staten. Det kunne fx også gælde øget indkomst til fisketegn fra pensionister, hvor der så dobles op. Men det er noget, der skal diskuteres nærmere.
Kvælstof fra landbruget – den store elefant i rummet
– Den store elefant i rummet er jo, som vi alle ved, at hvis der skal komme flere fisk, så er vi nødt til at gøre noget seriøst ved forureningen og kvælstofudledningen fra landbruget, fortsætter Martin. – Det er dog ikke noget vi tager stilling til i dette oplæg, for det er noget, der skal diskuteres i Den Grønne Trepart.
En anden ting vi gerne vil gøre noget for, det er at give bedre muligheder for fiskeguides. Det er som sådan heller ikke med i dette oplæg, men der er er mange, som har spurgt efter, at vi gør noget her – eksempelvis tun. Det er også oplagt, at de kvoter, der ikke bruges, fordi erhvervsfiskere lukker ned og får ophugningsstøtte eksempelvis i Østersøen – tildeles lystfiskere og guides i stedet for at tilfalde en ny erhvervsfisker, hvis og forhåbentlig når – bestandene kommer op igen. Derved får vi meget mere samfundsøkonomi ud af det, men også et meget mindre fisketryk på bestandene. Det er også noget, som vi har bragt ind i diskussionen.
Hvordan går det så med forhandlingerne for at forbedre lystfiskeriet?
– Det er vigtigt at bide mærke i, at Radikale Venstre jo desværre ikke kan få alt vores politik gennemført med det samme, selvom vi ville ønske det, lyder det fra Martin Lidegaard. – Mange af forslagene i lystfiskeriudspillet har der ikke været direkte politisk anledning til at få diskuteret. Og politik er nu engang det muliges kunst, hvor det handler om at sætte politiske aftryk, når chancen opstår.
– Dermed ikke sagt, at der ikke sker noget! Vi arbejder som nævnt benhårdt på at få et omsætningsforbud ind i de igangværende erhvervsfiskeriforhandlinger. Og vi er meget fortrøstningsfulde, selvom det kan gå både den ene og den anden vej. Vi kommer ikke til at få det hele igennem, men jeg tror vi får ganske meget igennem. Vi forventer også at håndtering af udfordringerne med skarvens pres for at genetablere sårbare fiskebestande bliver en del af fiskeriforhandlingerne. Faktisk har alle partier meldt ud at vi skal gøre noget ved disse udfordringer, så her er det ret sikkert at der nok sker noget inden for de rammer, der er sat fra EU. Radikale Venstre fremlægger derudover også et politisk udspil i morgen, som skal sikre bedre adgang til Danmarks natur herunder også nedsættelse af en Allemandsrets-kommission som skal se på hvordan vi kan sikre brede rettigheder for alle naturelskere mv. at færdes i naturen og det åbne landskab.

Radikale Vewnstre vil arbejde for fuldstænding fri passage omkirng Tange Sø på Gudenåen og vandkraftssøen på Storåen.
Hvordan sikres fri passage i de store åer
– Jeg har blandt andet selv været oppe og fiske i Store Å i Holstebro, fortsætter Martin. – Jeg arbejder fortsat på at få opbakning til et ambitiøst omløbsstryg med et naturligt fald, så vi kan leve op til vores EU forpligtelser og sikre en løsning som nyder bred politisk opbakning. Det samme med Gudenåen ved Tangeværket, men dette er noget, der skal diskuteres via Den Grønne Trepart. Her er der også mange flere penge i spil, end der er i det, som vi snakker om i forbindelse med dette lystfiskeroplæg. Jeg tror dog, at skal vi have dette på plads, så skal vi for det første sikre en langt større og friere passage, der gør, at vi kan overholde EU’s vandrammedirektiv. En fuld dræning af søerne bliver dog svært at gennemføre politisk – blandt andet på grund af potentiel anvendelse til klimasikring. Derfor tror jeg, at skal vi have noget til at ske her, så bliver staten nød til at finde pengepungen frem og lave nogle store samt velfungerende løsninger. Dvs fulde og hele passager med fuldstændig frit gennemløb. Vi kan ikke længere leve med, at dette er uafklaret. Dette vil dog først kunne blive løftet lidt længere henne i de grønne trepartsforhandlinger.
Martins fiskedebut i Grønland
– Jeg lærte helt autodidakt at fiske af min far, da han arbejde i Grønland for mange år siden, afslører Martin. – Så mit lystfisker liv startede med at fange fjeldørred i elvene deroppe, hvor der nok ligger for mange tusinde kroner af mine blink på bunden…. Vi kaldte det grydejagt, for vi gjorde også for at få nogle fisk at spise. I mit voksenliv med travlt fuldtidsarbejde, familie og børn, får jeg dog ikke tid til at fiske så meget. Det meste af mit fiskeri foregår derfor fra mit sommerhus ude ved Sjællands Odde, hvor jeg typisk går og kaster efter havørred uden at fange særlig meget. Derfor supplerer jeg med lidt fiskeri, hvor jeg sætter garn efter lidt fladfisk kystnært sammen med pigerne. Og – så er der engang imellem en af de professionelle lystfiskere, der inviterer mig med ud til de helt rigtige steder. Det er, hvad det bliver til i dag. En ting er sikkert – jeg elsker at fiske og synes, at det er super sjovt.
– En af grundene til at jeg har kastet mig ud i det her, at jeg kan se den store forskel fra dengang jeg var knægt. Eksempelvis kunne man i Sejerø Bugten sejle ud og fange masser af torsk bare på kastefiskeri 100 meter fra land. Selv prøvede jeg faktisk at kroge en laks på en af de ture. Det kan man ikke mere, der er nærmest slet ingen. I dag er der selvfølgelig havørred, men det går ned af bakke for mange af arterne, så det nærmest kun er fladfisk, der er lidt af. Det jeg vil sige med det er, at det er gået sørgeligt meget tilbage, og det skal vi naturligvis gøre noget ved. Jeg er ikke i tvivl om, at hvis ikke vi får gjort noget ved det helt store problem – nemlig alt for meget kvælstof fra landbruget, så forsvinder fiskene jo helt. Det er de sidste krampetrækninger. Jeg kan slet ikke holde tanken ud, om at vi skulle efterlade døde vandløb, søer og have til vores børn
Læs mere om Radikale venstres oprindelige udspil i artiklen – Radikale – et levende lystfiskeri i Danmark samt i denne nyhed – Lystfiskerne skal med i fiskeriaftalen.
maj 9, 2025 | Artikler, Betalt samarbejde, Fiskeri generelt, Miljø og debat
Siden 1993 har lystfiskere over hele landet indløst fisketegn og bidraget positivt til vandmiljøet, biodiversiteten og de oplevelser, der gør dansk lystfiskeri helt særligt.
AF REDAKTIONEN
Midlerne fra fisketegnet går nemlig tilbage til naturen og fællesskabet via Fiskeplejen – en unik dansk model, der sikrer udsætninger af fisk og pleje af fiskebestande, forbedringer af vandløb og forskning i fiskenes adfærd. Alt sammen for at beskytte og forbedre fiskenes levesteder. Både nu og i fremtiden.
– Spørger du os, er netop fisketegnet – herunder vores fælles bidrag – hemmeligheden bag Danmarks unikke lystfiskeri, lyder det fra Lystfisker Danmark, som netop har lanceret en kampagne for at få flere til at købe fisketegn. – Fra man får sin allerførste fisk på krogen til de helt store og sjældne fangster. Og alle de gange, hvor man ikke fanger andet end stemningen. Fisketegnet sikrer nemlig, at vi alle har en større chance.
Fisketegnet gennem 30 år
– At fremhæve enkelte resultater fra mere end 30 års arbejde yder ikke Fiskeplejen fuld retfærdighed, fortsætter Arne Kvist Rønnest, der er projektleder for Lystfisker Danmark. – Alligevel gør vi forsøget her, fordi vi ønsker at udbrede konkret viden om vores fælles bidrag. For det er ikke så lidt, vi har opnået, og det kan vi være stolte af samt takke hinanden for.
– Så uanset om du bor i dine waders eller stadig har din første ørred til gode, er dit fisketegn med til at gøre en forskel. For fællesskabet, naturen, vandmiljøet og biodiversiteten.
Fisketegnsmidlerne – et udpluk af resultater
Den vilde atlanterhavslaks: Fiskeplejen har med viden, overvågning og vandløbsforbedring hjulpet den vilde atlanterhavslaks tilbage. Som et lille håb i den truende biodiversitetskrise migrerer den ikoniske fisk, som mange troede var uddød, nu igen tilbage til danske vandløb. Den findes bl.a. i åerne ved Varde, Skjern, Ribe og Storå.
Havørreder i hobetal: Flere vandløb end nogensinde før huser nu selvreproducerende bestande af havørreder takket være Fiskeplejen. Og selvom vi langt fra er i mål, er der nu god økologisk tilstand i 16 pct. af danske vandløb. Et lille men godt skridt på vejen for Danmarks signaturfisk nummer ét – og alle dens fans ikke mindst.
Fritidsfiskernes data satte iltsvind på dagsordenen: Gennem mere end 20 år har fritidsfiskere systematisk bidraget med data fra deres fiskeri. På den måde har man kunnet følge udviklingen i bestanden af fx skrubber, torsk og pighvar. Projektet hedder Nøglefiskprojektet, og midlerne går blandt andet til at udgive en rapport om de tilstande, man kan dokumentere. Så sent som i 2023 var rapporten medvirkende til at skabe massiv omtale af det dårlige havmiljø og konsekvenserne ved iltsvind.
Genoprettelse af kystnære områder ved Lillebælt: Fisketegnsmidlerne kan ikke løse alle problemer i det maritime. Tilgengæld bruges midlerne løbende til at lave demonstrationsprojekter, som giver vigtig viden om blandt andet genoprettelsen af de kystnære områder. Fx har man med fisketegnets midler etableret et nyt smoltrev i Lillebælt
Frit vandløb over hundredvis af kilometer: Efter årtiers spærringer af vandløb, forsvinder disse nu i raskt tempo. Mange af de store vandløbssystemer flyder nu frit over lange strækninger, og flere og flere åbnes op takket være Fiskeplejens dokumentation og viden om spærringernes skadelige virkninger.
Få flere fiskehemmeligheder på fishingindenmark.info
– og sidst, men ikke mindst – køb dit fisketegn på fisketegn.dk her.
mar 27, 2025 | Artikler, Miljø og debat, Nyheder, Predatorfiskeri, SANDART
I takt med sandartfiskeriets opblomstring efter stoppet for erhvervsfiskeri for et par år siden, er søen blevet utrolig populær – hvilket vidner om sandartfiskeriets enorme potentiale. For at beskytte søen er der nu skærpet opsyn og højere bøder i vente for brud på reglerne.
AF JENS BURSELL
Sjællandske søfiskere har i årtier kæmpet for at få lov til at bruge el-motorer på landets største Arresø, hvilket for nogle år siden lykkedes i form af tilladelse til, at elmotorer kunne registreres på de både, som har motortilladelse – pt på 10 foreningsbåde, der i forvejen havde motortilladelse. Der har dog på det seneste kørt rygter om, at elmotor nu ikke længere er tilladt på Arresø. Det har ledt til en del forvirring i søfiskemiljøet, hvor mange har troet, at der fornylig er indført et forbud, som ikke var der før. Det er ikke tilfældet.
Forvirring om brug af elmotor på Arresø
Vi har talt med Bjørn Aaris-Sørensen fra Naturstyrelsen, som har ansvaret for de nordsjællandske søer:
– Der er ingen dramatik. Reglerne er helt som de altid har været, nemlig at der er udstedt 10 motortilladelser til de 10 foreningsbåde, fortæller han. – Der er tale om en specifik motortilladelse, der som sådan ikke går på båden, men på selve motoren. Så kan foreningerne selv bestemme om deres tilladelse skal bruges på en elmotor eller en benzinmotor – og vi ser gerne førstnævnte, da det helt oplagt er mindre larmende og dermed mere optimalt i et fuglebeskyttelsesområde.
– Der er altså ikke kommet nogle forbud, som der ikke har været der i forvejen, understreger han. – Vi har blot indskærpet til foreningerne, at hvis man vil have tilladelse til at bruge en elmotor på foreningsbåde, så skal motoren registreres, før den kan bruges. Men da der stadig pt kun er ti motortilladelser, kan en ny elmotor ikke tillades, før man afregistrerer en af de andre benzinmotorer. Man kan altså ikke medbringe sin egen uregistrerede elmotor – selv på en foreningsbåd med motortilladelse.
– Når det er sagt, så har vi observeret folk, der isætter både og sejler med motor uden tilladelse – også i den sydelige del af søen, hvor der slet ikke må sejles med hverken både med motortilladelse – eller både med motor uden motortilladelse. Tilsvarende har vi observeret brug af både med motor om natten, hvilket heller ikke er tilladt. Vi har pt indgivet 3-4 politianmeldelser og vil dermed gerne sende et signal om at reglerne selvfølgelige skal overholdes. Der vil blive sat skilte om med færdselsregler på søen, hvilket også betyder, at bødestraffen automatisk vil blive hævet ved overtrædelse af reglerne, afrunder han.
Ud over de 10 motortilladelser til lystfiskerforeningerne, har det tidligere skabt forvirring af nogle både – fx sejlbåde – på søen har haft tilladelse til brug af elmotor. – Dette kun er med særlig tilladelse fra NST – og det er ligeledes knyttet til særligt brug og helt specifikke tilladelser. Man må altså som lystfisker ikke bruge uregistreret el-motor – heller ikke til havnesejlads, hjælpe- eller bugseringstilladelse.
Et godt og bæredygtigt fiskeri på Arresø i fremtiden
Det er fint diskussionen kommer op – for det giver god anledning til selvransagelse for os lystfiskere til at tænke os om en ekstra gang. Der er lige nu et super godt fiskeri på Arresø, hvilket vi selvfølgelig skal bibeholde. Det bedste vi kan gøre for både søen, fiskebestanden og os selv – det er at overholde reglerne, så der vil bliver set med positive briller på vores færden som lystfiskere på søen. Og dermed dannet grundlag for et fremtidigt regelsæt der sikrer en godt, bæredygtigt fiskeri, hvor alle kan være med og nyde denne fantastiske sø.
Og – egentlig er der er ingen grund til at vente på fremtidige bekendtgørelser mv. Et oplagt tiltag er at lave eksempelvis en baglimit. Det kunne fx være 2-3 sandart pr dag til eget forbrug. Det kunne man let indføre i foreningerne allerede, for at beskytte bestanden for overfiskeri.
Fisk & Fri har tidligere skrevet om reglerne på Arresø her.
feb 26, 2025 | Artikler, Miljø og debat
PRESSEMEDDELSE: Lystfiskeriet skal styrkes med den kommende fiskeriaftale. Det mener Radikale Venstre, som har tre konkrete ønsker med til de kommende forhandlinger. ”Økonomisk og velfærdsmæssigt har lystfiskeriet et enormt potentiale”, påpeger Martin Lidegaard. Danmarks Sportsfiskerforbund og brancheorganisationen Dansk Lystfiskeri er begejstrede.
– Lystfiskerne glimrer ved deres fravær i regeringens udspil om fremtidens fiskeri – selvom mere end 500.000 danskere hvert år kaster snøren i vores søer, åer og i de kystnære farvande. Det giver ingen mening, påpeger leder for Radikale Venstre, Martin Lidegaard.
Derfor præsenterer Radikale Venstre i dag tre konkrete forslag, som skal sikre et bedre lystfiskeri fremadrettet.
– Vi går nu ind til forhandlingerne med en række ønsker for lystfiskerne, herunder at undtage fem fiskearter for kommerciel fangst og sætte flere penge af til fiskepleje – udover ønsket om i det hele taget at skabe et mere bæredygtigt fiskeri i Danmark, så der også er fisk at fange for kommende generationer, siger Martin Lidegaard.
Helt præcist ønsker Radikale Venstre, at de populære arter for lystfiskere laks, sandart, gedde, aborre og havørred ikke længere kan omsættes kommercielt, men kun fiskes til eget brug.
Derudover skal økonomien omkring den nationale fiskepleje-ordning styrkes markant. Ordningen har til hensigt at fremme den naturlige reproduktion af fiskebestandene og dermed forbedre det rekreative fiskeri. Ifølge Radikale Venstre bør pensionister fremadrettet også være forpligtet til at indløse det statslige fisketegn til ca. 200 kroner årligt, og samtidig skal staten som minimum fordoble den samlede indbetaling fra fisketegnet, som i dag udgør ca. 35-40 mio. kr. årligt.
– Økonomisk og velfærdsmæssigt har lystfiskeriet et enormt potentiale. Det bør vi understøtte med den kommende fiskeriaftale, siger Martin Lidegaard.
Branchen bakker op
Brancheforeningen Dansk Lystfiskeri bakker fuldt op om Radikale Venstre forslag.
– En fisk fanget af en lystfisker er mange gange mere værd end en tilsvarende fisk fanget kommercielt. Det kommercielle fiskeri på de fem arter har en lav værdi på fiskeauktionerne, men en enorm værdi for lystfiskeri og turisme. Det regnskab burde være lavet for længe siden, siger formand Peter Lyngby og fortsætter:
– Der tales meget om treparten i øjeblikket, og det er i den forbindelse afgørende, at vi tilfører flere midler til Fiskeplejen. Sunde fisk er det væsentligste parameter på vande i god økologisk tilstand, så det er vigtigt, at Fiskeplejen får de ekstra ressourcer. I den sidste ende vil der være tale om en god forretning i Radikale Venstres foreslåede krone-for-krone princip, siger Peter Lyngby.

Havørred er en af de fiskearter, som de radikale vil frede for kommercielt fiskeri – og sammen med laks, gedde, aborre og sandart ophøje til “gamefish” arter. Øverst Martin Lidegaard, der i dette øjeblik holder oplæg om de radikales dagsorden for det danske lystfiskeri til generalforsamlingen for brancheforeningen Dansk Lystfiskeri på fynske Broholm Slot.
Begejstrede sportsfiskere
Radikale Venstres forslag vækker også begejstring hos landets største lystfiskerorganisation, Danmarks Sportsfiskerforbund.
– Lystfiskeri er en væsentlig del af hundredtusindvis af danskeres fritid og identitet. Og med en årlig omsætning på over 2 mia. kroner er det også en væsentlig økonomisk faktor i dansk økonomi. Vi bakker derfor klart op om Radikale Venstres forslag, som kan give et gevaldigt løft til det danske lystfiskeri, siger Torben Kaas og fortsætter:
– Vores havmiljø og dermed mange hjemmehørende fiskearter er under hårdt pres, og mulighederne for at dyrke lystfiskeri er over de seneste år blevet indskrænket markant. Et forbud mod kommerciel fangst af fem af de mest populære arter for lystfiskere er derfor en stor og vigtig håndsrækning, som vil sikre et langt mere bæredygtigt og samfundsøkonomisk fornuftigt fiskeri, slutter Torben Kaas.
Fakta – Lystfiskeri i Danmark
- Der er omkring 567.900 danske lystfiskere, der bruger næsten 2 milliarder kroner årligt.
- Udenlandske lystfiskerturister bidrager med omkring 200 millioner kroner årligt.
- Det samlede direkte økonomiske forbrug fra lystfiskeri udgør 2,15 milliarder kroner årligt.
- Lystfiskeri understøtter både den danske økonomi og samfundets trivsel.
- Lystfiskere og fritidsfiskere bidrager årligt med 35-40 mio. kroner til den nationale fiskepleje-ordning via det obligatoriske, statslige fisketegn.
Kilde: ”Den økonomiske betydning af lystfiskeri i Danmark”, Dansk Lystfiskeri, Lystfisker Danmark og Niras, 2024.
Fakta – Radikale Venstres forslag
- Laks, sandart, gedde, aborre og havørred skal ikke længere kunne omsættes kommercielt, men kun fiskes til eget brug.
- Pensionister skal også betale det obligatoriske statslige fisketegn, hvilket vil sikre flere midler til ophjælpning af fiskebestandene.
- De penge, som lystfiskerne bidrager med til fiskeplejen, skal mindst fordobles af staten. I dag indbetale de danske lystfiskere via Fisketegnet ca. 35-40 mio. kr. årligt.