sep 18, 2026 | Artikler, Miljø og debat
Alt tyder på – som eftervist i del 2, at mellemskarven er en indført art i Europa, hvormed den – hvis dens status ændres på EU-plan – sandsynligvis også vil blive kategoriseret som invasiv. Altså som en art der skal bekæmpes – oplagt efter samme princip som fx mårhunden, der er spredt hertil på omtrent samme måde.
AF JENS BURSELL, FOTO: LARS LAURSEN & ADOBE STOCK
I del 1 og 2 har vi afdækket, at der ikke er dokumentation for, at mellemskarven er hjemmehørende i hverken Danmark eller Europa – samtidig med, at vi har eftervist, at best available science faktisk tyder på, at den er indført med menneskelig hjælp.
Mellemskarven er pt officielt beskyttet som en hjemmehørende art i Europa under EU’s Fugledirektiv – 2009/147/EC. En eventuel ændret status for mellemskarven på EU-plan vil naturligvis kræve mere research og en dyberegående peer-reviewed artikel, der afprøver den velunderbyggede teori om, at den er indført. Hertil kommer en længere politisk proces, inden man kan regne med, at der måske sker noget nyt. Hvis først mellemskarven får ny status som ikke-hjemmehørende, så vil den næste diskussion uden tvivl blive, hvorvidt den så skal kategoriseres som invasiv eller ej?
Meget tyder p.t. på, at mellemskarven er en ikke-hjemmehørende art i Europa, der er spredt hertil på samme måde som den invasive mårhund, der ses til højre ovenfor.
Hvornår er en art invasiv?
En art – eller underart – kan pr definition kun være invasiv, hvis den først er kategoriseret som indført eller ikke-hjemmehørende. Hernæst skal den yngle – hvilket mellemskarven i høj grad gør. Og – såfremt en indført art rent faktisk ikke påfører den oprindelige natur skade, kan man således sagtens have en indført art, som ikke er invasiv – fx karpen.
Når man skal vurdere om en art er invasiv, foregår det efter en nøje fastlagt procedure, hvor arten får en score 1-3 i kategorierne spredningspotentiale, levestedets bevarings- og naturværdi, påvirkning af hjemmehørende arter, påvirkning af økosystem funktioner samt økonomiske og helbredseffekter. 0 svarer til ingen, 1 svarer til lav, 2 svarer til middel og 3 svarer til høj påvirkning.
Potentielle og aktuelle negative miljø effekter vurderes med udgangspunkt i den belgiske HARMONIA-metode (også kaldet ISEIA guidelines) – og hertil vurderes negative effekter på sundhed og økonomi.
For at blive kategoriseret om invasiv skal arten normalt opnå en score på 14 eller derover.
Læs mere om invasive arter her.
Oprindelig, indført eller ikke-hjemmehørende?
Der er mange måder, hvorpå en art kan være indført ved menneskelig hjælp til et nyt område, hvortil den ikke ville have kunnet sprede sig naturligt. Det kan enten være en direkte menneskelig transport fra artens oprindelige udbredelsesområde fra A til B, eller det kan være en mellemting, hvor arten er transporteret af mennesker fra A til et nyt område B, hvortil den ikke selv kunne have spredt sig, hvorefter den selv har bredt sig det sidste stykke vej til C. Førstnævnte kan enten eller både være sket i ét eller mange trin samt i en eller mange omgange. Sidstnævnte kan enten være sket ved, at arten har udkonkurreret en eksisterende lignende art og overtaget – eller blot ved, at den har spredt sig ”naturligt” over større afstande og gradvist har etableret nye populationer i de nye områder.
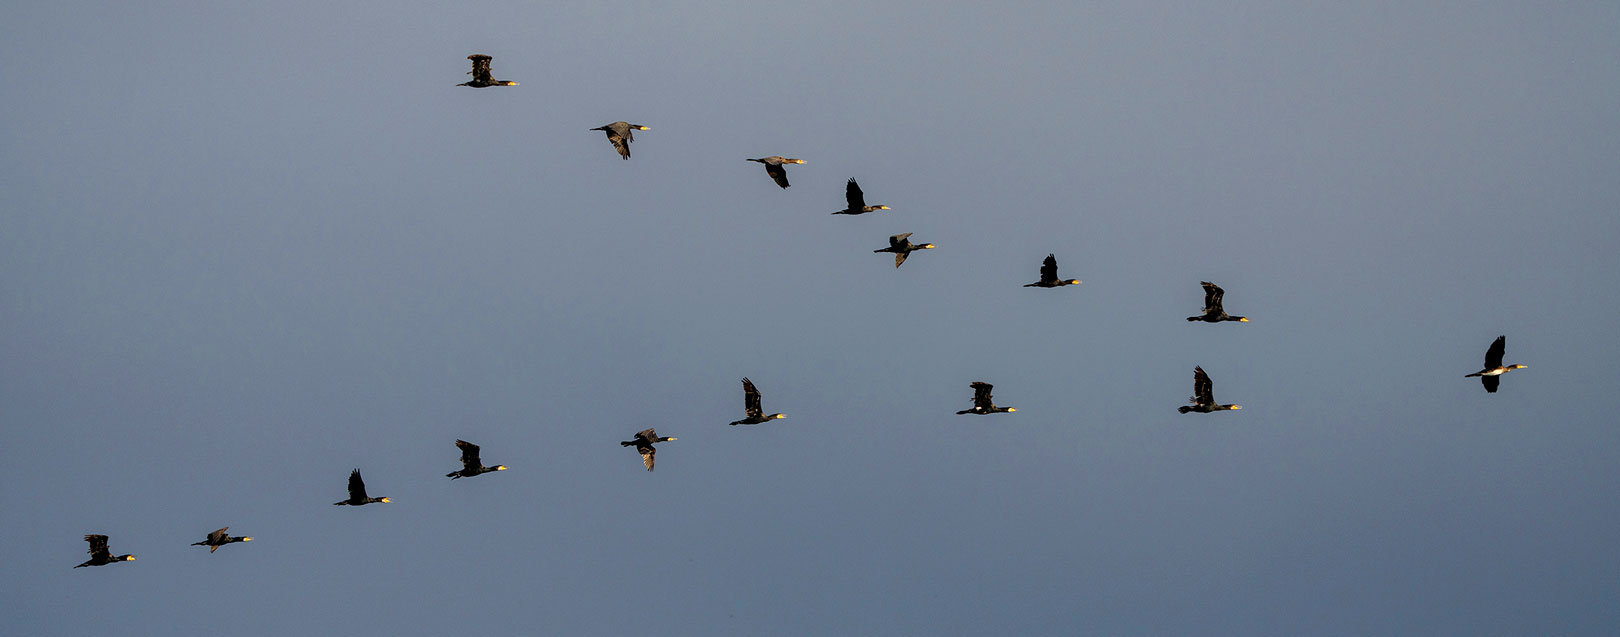
En stor del af de danske mellemskarver trækker sydpå om vinteren, men der er også en del, der bliver i landet. I trækperioden er der ydermere en masse skarv – især mellemskarv – fra de omkringliggende lande, der trækker igennem Danmark – og en del bliver her og overvintrer. Storskarven udgør en mindre del af de overvintrende skarv i Danmark.-
Mellemskarvens negative effekt på fiskene, fiskeriet og biodiversiteten
Der er omfattende dokumentation for den massive negative effekt skarven har på de europæiske fiskebestande, hvilket blandet andet er opsummeret i EIFAAC rapporten fra 2025: ”Framework for a European management plan for the great cormorant. European Inland Fisheries and Aquaculture Advisory Commission”. Tilsvarende er der solid dokumentation for de økonomiske tab skarverne påfører fiskeriet i Europa i EIFAAC rapporten FAO. 2026. ”European inventory of fish damages caused by cormorant predation”. Occasional paper No. 60.
Det siger næsten sig selv, at også biodiversiteten går ned i de områder, hvor skarven gør et massivt indhug i rødlistede, sårbare eller fåtallige bestande af fx snæbel, ål, laks, bæklampret, dyndsmerling, helt, flodlampret, hvidfinnet ferskvandsulk, stalling og stavsild og stør.
Mellemskarven kan også påvirke biodiversiteten af fugle, hvilket efter eftervist i af Verliin et al. i 2026. Her havde en forskergruppe analyseret fugledata for et 62 årigt datasæt på en række Estiske øer, og de fandt, at biodiversiteten – målt på det klassiske Shannon Biodiversitets Index – faldt signifikant ved etablering af mellemskarvkolonier.
Bliver det endeligt eftervist, at mellemskarven som indført fugl gradvist har fortrængt storskarven, så er dette også en klassisk invasiv effekt.
Som skitseret ovenfor, er det altså realistisk at antage, at hvis først mellemskarven bliver kategoriseret som ikke-hjemmehørende, så vil den sandsynligvis også blive erklæret invasiv.
Forvaltning af invasiv mårhund – præcedens for mellemskarv?
Men hvad så? Hvad er der af præcedens for, hvordan man forvalter en indført og invasiv art med en spredningshistorik, der minder om mellemskarvens? Et godt eksempel på en art, der forvaltningsmæssigt regnes som invasiv, er mårhunden. Den kommer oprindeligt fra Fjernøsten i et naturligt udbredelsesområde, som minder rigtig meget om den mest sandsynlige oprindelige udbredelse af mellemskarven for 2-5.000 år siden (del 2) – og oven i købet fra samme typer af habitater som mellemskarven.
Mårhunden blev over en periode fra 1928-1955 flyttet fra Fjernøsten og udsat i det vestlige Sovjet og østlige Ukraine med det formål at give bedre mulighed for jagt på pelsdyr, hvorefter den selv har spredt sig resten af vejen til Europa. Præcis som mellemskarven der – som beskrevet i del 2 – sandsynligvis er ført over den samme centralasiatiske spredningsbarriere af mennesker, hvorefter den selv kan have spredt sig videre vestpå mod og op gennem Europa.
Det betyder altså, at der er præcedens for at definere en art som invasiv, hvis den er flyttet af mennesker til et nyt område, hvortil den ikke ville kunne være kommet selv – hvorefter den selv har spredt sig videre via ”naturlig indvandring” over større afstande til de nye områder, hvor dens status som invasiv diskuteres. Mårhundens og mellemskarvens spredningsmønster er altså sandsynligvis påfaldende ens.
Erklæres mellemskarven som ikke-hjemmehørende i Europa, vil der altså allerede være præcedens for hvad der så skal ske – nemlig en målrettet bekæmpelse af arten. I Danmark er det på statens områder Naturstyrelsens ansvar at stå for bekæmpelsen.
Læs mere om forvaltning af den invasive mårhund her.
Evidensbaseret forvaltning af mellemskarven – her og nu?
Det bliver spændende at følge, hvad der kommer til at ske, nu hvor det med afsæt i eksisterende forskning er sandsynliggjort, at mellemskarven sikkert er en indført art i Europa.
For at få afklaret mellemskarvens fremtidige status i Europa hurtigst muligt, er det oplagt først at dokumentere skarvens spredningshistorik med en interdisciplinær tilgang som i del 2 – men som fagfællebedømt videnskabelig publikation. Dernæst bør evidensen for de efterviste spredningsteorier testes og perspektiveres med en større genetisk undersøgelse. Det skal optimalt set ske på både DNA fra subfossile skarv og nutidige skarvpopulationer i hele Eurasien og Afrika, så vi kan få et detaljeret billede af melleskarvens spredningshistorik, og komme frem til en endelig afklaring: Skal mellemskarven beholde sin status som hjemmehørende – eller skal den omdefineres til ikke-hjemmehørende og dermed sikkert også til en invasiv art?
En større genetisk undersøgelse, der giver et både sikkert og komplet billede af mellemskarvens historie, kan sikkert tage en hel del år. Indtil da kan der argumenteres for, at rettidig omhu – baseret på best available science – her og nu vil være at nedregulere bestandene af mellemskarv markant, men reversibelt. På denne måde kan man relativt hurtigt få nedsat det voldsomme prædationstryk, der lige nu er på de europæiske fiskebestande, samtidig med, at man altid kan lade populationen af europæiske mellemskarv brede sig igen, hvis det senere skulle vise sig, at den faktisk er en oprindelig europæisk art. Vi har siden firserne set, hvor hurtigt mellemskarven kan ekspandere, hvis den får lov til det. Så længe vi bibeholder en population af mellemskarv, der akkurat er stor nok til, at den med sikkerhed kan klare sig, vil der sandsynligvis være mere at vinde ved denne tilgang – end det modsatte.
Læs del 1 af artiklen “Er mellemskarven hjemmehørende i Denmark?
Læs del 1 af artiklen “Er mellemskarven hjemmehørende i Denmark – og Europa?
LITTERATUR:
Verliin et al: “Loss of avian biodiversity on Baltic islands after establishment of cormorant colonies” Proceedings B, Vol. 292, Issue 2071, 2026.
sep 11, 2026 | Artikler, Miljø og debat, Nyheder
Subfossile fund af skarv viser, at bestanden i Europa og Asien i forhistorisk tid var adskilt af en massiv naturlig spredningsbarriere i det centralasiatiske højland, som delte fuglene i to populationer. Alt taler for, at spredning af mellemskarv fra øst mod vest kun kan være sket ved menneskelig hjælp, hvormed der er god evidens for, at den europæiske mellemskarv ikke er en oprindelig del af den danske og europæiske natur.
AF JENS BURSELL, BIOLOG, FOTOS: LARS LAURSEN & ADOBE STOCK
Der findes – som afklaret i del 1 – hverken subfossil eller genetisk dokumentation for, at mellemskarven er en oprindelig del af den danske natur. Og – når det på basis af fåtallige knoglefund ikke er muligt at differentiere på mellem- og storskarv i Danmark, så gør det samme sig naturligvis også gældende i resten af Europa, hvor der p.t. heller ikke er hverken subfossil eller genetisk dokumentation for, at mellemskarven er en oprindelig del af naturen.
De fleste tidligere studier af den europæiske skarvs historie har fokuseret relativt snævert uden at se dens historie i et større tidsmæssigt og geografisk perspektiv. For at afklare mellemskarvens herkomst i/til Europa, er det derfor oplagt at kigge videre på subfossile fund, zoogeografiske zoner og naturlige spredningsbarrierer i Eurasien i forhistorisk tid gennem epokerne Holo- og Pleistocæn. Dette – kombineret med en evolutionær interdisciplinær vinkel – kan give et nyt evidensbaseret bud på spredningshistorikken for skarven – Phalacrocorax carbo samt dens to underarter storskarv (carbo ssp.) og mellemskarv (sinensis ssp.).

Diffus spredning af mellemskarv vestpå fra Asien mod Europa af mennesker fx via Silkevejen er en ud af flere mulige forklaringer på, hvordan den tidligere geografisk isolerede asiatiske mellemskarv kan have nået frem til Europa, hvor den sidenhen har spredt sig vidt og bredt. (AI GENERET – Jesper Fohrmann)
Diffus menneskelig og ”naturlig” spredning af mellemskarv fra Asien – vestpå til Europa
Mit bud på, hvad der bedst kan forklare den nuværende udbredelse af mellemskarv på verdensplan er, at storskarven er den oprindelige europæiske underart, som har været geografisk adskilt fra mellemskarven i Østasien af den store centralasiatiske spredningsbarriere. Herefter kan der være sket en gradvis og diffus spredning ved menneskelig hjælp fra Østasien over den centralasiatiske spredningsbarriere vestpå til Øst- og Sydeuropa over en længere periode på måske 500-1.000 år. Det kan både være sket langs Silkevejens omfattende net af landlige og maritime handelsruter – eventuelt kombineret med mere direkte transporter eller decideret import (Olburs 2008).
Herefter er det sandsynligt, at der kan have været sket (a) videre ”naturlig” og (b) unaturlig spredning af mellemskarv V, NV og NØ-over gennem Europa, hvor (a) mellemskarven gradvis har udkonkurreret storskarven og b) evt. direkte introduktioner fra Asien og/eller re-domesticering af ”vildt indvandrede” mellemskarv af asiatisk oprindelse har accelereret spredningen af mellemskarv yderligere nordover. Sidstnævnte kan oplagt være sket efter, at interessen for jagt med fiskeskarv eskalerede fra starten af 1500-tallet i Venedig (Olburs 2008, Beike 2013, 2014) og senere forstærket af interessen for skarvjagt i renæssancens Frankrig, Holland og England (Olburs 2008, Beike 2013, 2014).
Denne nye teori om gradvis indførsel af asiatiske mellemskarv til Europa over en bred front i tid og rum – kombineret med ”naturlig spredning” af dens asiatiske gener op gennem Europa er ikke i konflikt med faktuelle oplysninger og konkrete resultater fra tidligere studier, men underbygger og forklarer snarere en række af de hidtil ubesvarede spørgsmål, som tidligere undersøgelser og litteraturstudier har affødt. Her får du baggrunden for mit synspunkt:
7.500 km mellem europæiske og asiatiske skarv i Pleistocæn
Tidsalderen, der ligger før 11.700 år siden, hedder Pleistocæn. Her er der registreret fund af skarv i de fleste europæiske lande som fx England, Irland, Tyskland, Tjekkiet, Italien, Schweitz og Spanien samt Israel, Egypten og længst mod øst – Aserbajdsjan. De to tætteste fund fra Danmark var fra Bayern og Norfolk – begge cirka 800 kilometer væk (Tyrberg 1998).
I hele Central- og Østasien er der kun ét sted, hvor skarven er fundet i denne tidsperiode – nemlig Japan (Tyrberg 1998). Her er det iøjnefaldende, at der er masser af fund i Europa – ingen overhovedet i Vest- og Centralasien – og så to fund i Japan.
Allerede her er det oplagt at tænke, at den vestlige, europæiske/mellemøstlige underart kunne være forfader til storskarven (Phalacrocorax carbo carbo) og den østlige underart forfader til mellemskarven (Phalacrocorax carbo sinensis) – samt at de to oprindeligt har været allopatrisk adskilt af en cirka 5-6.000 kilometer bred naturlig spredningsbarriere gennem Irans ørkener og bjergkæder, Nordpakistans bjerge, bjergkæderne Hindu Kush, Karakoarm, Pamir, Alai, Tien-Shan med bagvedliggende Himalaya, Det Tibetanske Plateau, Talamakan og Gobi Ørkenen samt Mongliets højsletter. Endvidere har store dele af området fra Østsiden af Det Kaspiske hav til vestsiden af det centralasiatiske højland været tørre stepper og ørkner, hvoraf hovedparten har været uegnet skarvhabitat – hvilket yderligere har besværliggjort en øst-vest spredning af underarterne (se verdenskortet nedenfor)
Fraværet af Pleistocæne skarvfund i dette bælte tværs over Asien fra Japan til Aserbajdsjan skyldes ikke fravær af relevante udgravninger her, eftersom der er foretaget 37 udgravninger med analyser af subfossile fugleknogler fra Iran, Irak, Kazakhstan, Kirgisistan, Uzbekistan, Mongoliet, Kina og den asiatiske del af Rusland (Tyrberg 1998) – uden at der er fundet én eneste skarv.

Når skarver trækker, flyver de i snit cirka 60-100 kilometer om dagen, inden de slår sig ned i et vådområde for at hvile og fouragere på friskfangede fisk. Selvom skarven kan flyve op til flere hundrede kilometer i et stræk, er det således usandsynligt, at den østlige underart af skarv – mellemskarven – skulle have spredt sig naturligt over den mange tusinde kilometer tørre og høje centralasiatiske spredningsbarriere, der ligger mellem de to oprindelige udbredelsesområder – Europa/Mellemøsten og den geografisk isolerede population i fjernøsten.
Europæiske og asiatiske skarv i Holocæn 11.700 år tilbage i tiden
Holocæn byder også på mange fund af skarv i Europa (Bregnballe og Gregersen 1995, Ericson og Carrasquilla 1997, Bullied og Grey 1911-17, Stewart 2002).
Søger man efter asiatiske subfossile fund af skarv fra Holecæn, er der fund fra SØ Tyrkiet ved Øvre Tigris 11.700-10.500 BP (Zeder & Spitzer 2016) samt Saudi Arabien fra cirka 5.000 BP (Monchot 2026), der oplagt kunne tilhøre den vestlige storskarv. NØ for dette områder ligger Den Persiske Golf samt ørknerne i Iran og Afghanistan som en massiv spredningsbarriere NØ på i retning af de centralasiatiske plateau.
Endvidere er der fund fra 9.020-8.650 BP fra Baikal Søen i Sibirien (Nomokonova et al. 2015), men da dette fund ligger nord for den nuværende nordligste udbredelse – sandsynligvis på grund af det Holocæne temperatur maximum, der netop lå fra 10.300 – 7.900 BP, er dette fund mindre relevant i forhold til historikken omkring evt. menneskelig spredning af mellemskarv vestpå, da dette var langt før den tid, hvor skarverne blev domesticeret (diskuteres nedenfor). Den koldeste periode på det nordcentralasiatiske plateau lå fra 4.000-200 BP (Bliedtner 2022), hvilket netop må have gjort det ekstra svært for kinesiske mellemskarv/fiskeskarv at sprede sig naturligt vestpå i de par tusind år, hvor skarvdomesticeringen kan været opstået samt udviklet – og eksakt samme periode, hvor handelen på Silkevejen toppede.
Desuden er der subfossile fund af skarv fra Asien fra 4.000 BP verificeret med aDNA fra Det Tibetanske Plateau 300 km vest for Lhasa (Wang et al. 2025). Disse kunne oplagt være en del af den østlige mellemskarv. Lhasa floden ender i Brahmaputra, som flyder sammen med Ganges inden udmundingen i Den Bengalske Bugt, hvilket indikerer, at der sikkert også har været mellemskarv i Nordindien på det tidspunkt. Hertil kommer fund fra 7.000-4.500 BP fra det østkinesiske lavland (Liang et al. 2023).
Dette underbygger yderligere, at der også langt senere hen i Holocæn sandsynligvis stadig har været to populationer eller underarter af skarv – adskilt af det centralasiatiske højland. På dette tidspunkt var der nu en 4.500 kilometer bred spredningsbarriere mellem den nordøstlige og vestlige bestand af skarv. Det smalleste sted på spredningsbarrieren har været det cirka fem kilometer høje Karakoram Pas ved kilderne af Ganges op imod bjergkæden Karakoram, der ville skulle passeres, for at komme ned til vådområderne i Kirgisistan.
En massiv naturlig spredningsbarriere mellem Europa og Asien for mellemskarven
Det vest- og centralasiatiske højlands bjerge, stepper, tørstepper og ørkener udgør i alt et sammenhængende areal på omtrent 9 millioner kvadratkilometer gennem flere zoogeografiske zoner, hvoraf hovedparten ikke er attraktive skarvhabitater. Netop denne geografiske barriere har stor betydning, når man skal forholde sig til skarvens evolution og spredningshistorik.
En allopatrisk arts- eller underartsdannelse sker typisk, når en fysisk impassabel spredningsbarriere opstår inden for en arts udbredelsesområde. Eksempelvis kunne der have været en ubrudt udbredelse af forfædrene til skarven over det Eurasiske kontinent fra Europa til Japan, inden Det Indiske Subkontinent kolliderede med Eurasien, og skabte Himalaya samt hævede det centralasiatiske højland til det niveau, det er i nu for 13-15 millioner år siden under Miocæn. I denne proces blev underarterne effektivt fysisk adskilt som forfædrene til hhv storskarv i vest og mellemskarv i øst.
Det er svært at forestille sig, at den østlige eller vestlige skarv, skulle have krydset dette område uden menneskelig hjælp. En hypotetisk forklaring for naturlig spredning kunne være, at mellemskarven efterfølgende havde spredt sig naturligt vestpå nord om de centralasiatiske bjergområder gennem det sydlige Sibirien i det Holocæne temperaturmaximum (10.300 – 7.900 BP). Men – hvis det var tilfældet, så ville man også forvente at se subfossile fund af skarv/mellemskarv i det 4.200 kilometer brede og 3000 kilometer høje bælte mellem Baikal og Europa samt en mere sammenhængende nutidig udbredelse her. Ingen af delene er tilfældet, på trods af cirka 37 arkæologiske fugleudgravninger af Pleistocæne lag i området (Tyrberg 1998) – samt 22 arkæologiske Holocæne udgravninger af fugle fra 500-1.700 tallet omkring Volgafloden (Galimova et al. 2014), der danner grænse mellem Europa og Asien nord for Det Kaspiske Hav.
At mellemskarverne således næppe har bredt sig naturligt mod vest nordover gennem den østasiatiske del af den store palæarktiske zoogeografiske zone for fugle (Ben Holt et al. 2013), skyldes oplagt, at det gennemsnitligt er for koldt her. Det er således næppe tilfældigt, at mellemskarvens nuværende nordlige pan-eurasiske udbredelse nærmest eksakt følger sydkanten af denne zoogeografiske fuglezone, som er baseret på data for både udbredelse og fylogeni af en lang række eurasiske fuglearter. I den nutidige udbredelse af mellemskarv er der dog en forekomst i den sydlige del af den palæarktiske zoogeografiske fuglezone mellem russiske Tjumen og Kazakhstanske Shalkar. Dette område dog ligger så langt vest for den centralasiatiske spredningsbarriere, at det ikke sandsynliggør en naturlig spredning mod øst af mellemskarv denne vej, og var den kommet i den varmere periode fra 10.300 – 7.900 BP, ville man også forvente fund af skarv i de førnævnte mange udgravninger i regionen. Denne del af det nuværende yngleområde kan mere oplagt være afledt af en vestlig ekspansion af udbredelsesområdet medieret af menneskelig aktivitet.
Bird Count Indias interaktive kort over løbende skarvobservationer hen over hele året i regionen – inklusiv trækperioderne, giver en god visualisering af fraværet af mellemskarv over den centralasiatiske spredningsbarriere – samt illustrerer meget godt, at de nordlige centralasiatiske ynglepopulationer af mellemskarv også flyver uden om spredningsbarrieren på vej mod de sydlige overvintringspladser. Data på ringmærkede europæiske skarv, som ses på migrationatlas.org, sandsynliggør heller ikke, at opblanding mellem de to oprindelige Eurasiske skarvpopulationer, kan være sket ved et simpelt fejltræk. At den fremherskende vindreting på det centralasiatiske plateau går fra vest mod øst undersøtter usandsynligheden for, at en spredning over den centralasiatiske spredningsbarriere fra øst mod vest kan være sket naturligt ved eksempelvis et fejltræk i den østlige population.
Det forekommer således usandsynligt, at de to dengang adskilte skarvbestande har blandet sig naturligt hverken i Pleisto- eller Holocæn, hvilket kun efterlader den mulighed, at det nutidige udbredelsesmønster vi ser i dag sandsynligvis er betinget af menneskelig spredning. Se også et godt billede af udbredelsen af skarv på ebird.org.

Sådan kan den østlige underart af skarv – mellemskarven (Phalacrocorax carbo sinensis) – have spredt sig fra Asien til Europa ved menneskets hjælp: Med blåt er markeret de oprindelige udbredelsesområder af skarven (Phalacrocorax carbo sp.) baseret på subfossile fund gennem Pleisto- og Holcæn (i Asien groft extrapoleret ud fra få fund): Storskarven (Phalacrocorax carbo carbo) mod vest i Europa og mellemskarven i fjernøsten. Markeret med rødt ses Den Centralasiatiske Spredningsbarriere – et stort sammenhængende områder af høje bjerge, ørkner og tørre stepper, der tilsyneladende oprindeligt har adskildt mellemskarv og storskarv geografisk, hvorved de har udviklet sig til to selvstændinge underarter. Mellemskarven – der således næppe har kunnet sprede sig naturligt fra øst mod vest, kan således have være indført via diffus human-medieret spredning af silkevejens mange landlige (gule) og maritime (blå) ruter. Den tynde mørkeblå rute er Vasco da Gamas sørute syd om Afrika, der åbnede i 1498. Ruterne er indtegnet med løs hånd på baggrund af adskillige historikeres bud på handelsruterne. Efter ankomsten til Europa er hypotesen, at mellemskarven kan have bredt sig både Vest og Nordvestover som en kombination af “naturlig” og menneskelig spredning. Illustration: Adobe Stock/Martin Millinge.
Har de to underarter af skarv spredt sig med handel fra øst mod vest – eller omvendt?
Den nutidige bestand af mellemskarv er som vist på datazone.birdlife.org vidt udbredt mere eller mindre kontinuerligt fra Irland i Vest til Japan i øst – dog med en del større huller i udbredelsen især tværs over Centralasien.
Men – vi har lige set, at de to underarter var adskilt af en over 4.000 kilometer bred naturlig spredningsbarriere for 4.000 år siden, så spørgsmålet er, om den østlige population har bredt sig mod vest – eller omvendt?
Dokumentation for fiskeri med domesticerede mellemskarv siden 2.200 BP (He og Gremillet 2009) kombineret med omfattende handel med disse mellem alle Kinas provinser (Gudger 1926) sandsynliggør, at de med meget stor sandsynlighed kan have spredt sig med lokal handel hele vejen op til den store centralasiatiske spredningsbarriere mod vest – samt med menneskelig hjælp sandsynligvis også over denne og frem til de vestasiatiske stepper – selv uden efterspørgsel fra Europa.
Viden om skarvfiskeriet – og dermed også kimen til en potentiel efterspørgsel på domesticerede asiatiske mellemskarv – nåede dog allerede Europa senest i midten af 1200-tallet med den hollandske opdagelsesrejsende William van Ruysbroeck (Olburs 2008). Dette – kombineret med en omfattende handel med kinesiske mellemskarv til fiskeri forårsaget af regional og måske også spirende international efterspørgsel – sandsynliggør, at asiatiske mellemskarv gradvist og måske i mange omgange over adskillige århundreder kan have været ført med lokal transport og/eller måske større handelskaravaner på Silkevejen trinvist videre vestpå, indtil de til sidst er nået de kirgisiske oaser og senere Det Kaspiske Hav, hvorfra de kan have bredt sig videre ”naturligt” vestover – selv uden menneskelig hjælp.
Det omvendte – spredning af storskarv fra vest mod øst, forekommer usandsynligt. Dels fordi storskarven ikke p.t. har hverken vest- eller østasiatisk udbredelse, men også fordi det nutidige billede mere tyder på, at mellemskarven gradvist rykker sin udbredelse længere og længere N, NV og NØ over. Intet tyder på, at storskarv på noget tidspunkt har været en handelsvare, der potentielt set kunne have gået i østlig retning.
Der er altså ikke meget, der sandsynliggør, at mellemskarvens forekomst vest for den store centralasiatiske spredningsbarriere skulle være naturlig. Omvendt er det let at argumentere for at asiatiske mellemskarv til fiskeri kan være indført til Europa enten via direkte import (Olburs 2008) eller som diffus gradvis spredning via menneskelig hjælp, som skitseret ovenfor. Ja – faktisk forekommer det næsten usandsynligt, at en for europæere så opsigtsvækkende genvej til flere elitære statussymboler over en periode på så mange år ikke skulle være importeret til Europa på en ene eller anden måde – præcis som andre asiatiske fuglearter som fx fasan og påfugl er fragtet vestpå.

Om sommeren er det primært mellemskarv der yngler i Danmark, men over efteåret er der et kæmpe skarvtræk fra de omkringliggende lande i Danmark og senere på vinteren også mange overvintrende fugle nordfra, hvoraf en del er storskarv.
Marcus Beike beviser ikke, at Christer Olburs tese om indførsel af asiatiske mellemskarv er forkert
Olburs teori (2008) gik altså ud på, at europæiske søfarere i 15-1600-tallet – havde indført kinesiske fiskeskarv til Holland, hvorefter skarvfiskeri – fiskernes ”UV-falkonerjagt” – bredte sig som en gentlemansport blandt de europæiske eliter og hoffer op gennem 16-1800-tallet – hvilket via fx undslupne fugle oplagt kunne have været ophavet til den europæiske bestand af mellemskarv.
Årstallet og plottet passer godt med, at dette kunne være sket i kølvandet på Vasco Da Gamas opdagelse af søvejen til Indien i 1498, og at Jorge Álvares i 1513 havde indført direkte ruter for skibshandel til Kina. Men – selvom plottet er oplagt, fik Christer Olburs teori aldrig rigtig gennemslagskraft – nok især fordi tyskeren Markus Beike (2024) mente at tilbagevise Olburs teori.
Beike hverken beviser eller sandsynliggør, at mellemskarven er hjemmehørende i Europa
Marcus Beike havde bl.a. følgende tre hovedkritikpunkter: 1) At der ikke var konkret bevis for en specifik dokumenteret transport på det rette tidspunkt i forhold til hans teori, hvilket er korrekt, efter som der p.t. først eksisterer en skriftlig beretning om en konkret vellykket fragt af kinesiske fiskeskarv fra Asien til Europa i 1880 (Gudger 1926). 2) At de hollandske fiskeskarv i virkeligheden stammede fra engelsk indfangede og derefter trænede fiskeskarv (Beike 2014), som i princippet meget oplagt kunne have været storskarv. 3) Beretninger fra middelalderen i 840 og 990 (første skarvbeskrivelse i europæisk natur) samt 12-1500-tallet med den første europæiske ynglebeskrivelse i 1377, indikerede i hans optik, at der allerede var ”mellemskarv” i Europa før det tidspunkt Olburs argumenterede for, at den kunne være indført: ”The analyses show that there is no evidence for the introduction of birds from China. Instead, a medieval breeding record as well as regular appearance of the cormorant in religious and secular literature from the middle ages show that the bird was at least temporarily well-known in deeper inland regions of the german speaking area. The results raise strong doubts about the hypothesis of Phalacrocorax carbo sinensis being an introduced species, konkluderede han.
Denne konklusion er af mange (fejl)tolket som et bevis for, at mellemskarven skulle være en oprindeligt hjemmehørende fugl i Europa. Fakta er dog, at Beike (2014) ikke beviser noget, fordi det eneste han reelt kommer frem til, det er, at der ikke indtil videre er fundet dokumentation for en specifik transport af kinesisk mellemskarv til Europa, hvilket ikke er et bevis for, om det var mellem- eller storskarv, der var i Europa på det tidspunkt. De omtalte skriftlige kilder på europæiske skarv i den centraleuropæiske middelalder hverken dokumenterer eller sandsynliggør, at det skulle have været mellemskarv, eftersom 1) den blev først defineret som underart af Blumenbach i 1798 mange hundrede år efter og 2) beretninger om trærugende skarv er ikke et bevis for, at det rent faktisk var mellemskarv eftersom a) det ikke er en konservativ karakter i en evolutionær sammenhæng, b) der er eksempler på, at begge underarter kan bygge rede både på jord, klipper og i træer (Brown 1935, Berrow et al. 2024 m. fl.) – og c) En teori om gradvis spredning gennem Europa på grund af udkonkurrering sandsynliggør desuden, at det vi i dag ser som storskarvens nuværende primære ynglehabitat især på klipper, blot kan være resultatet af, at mellemskarven over tid har fortrængt storskarven nordvestover tilbage til det atlantiske område, hvor klipper rent lavpraktisk er en af de mest oplagte, sikre og almindelige potentielle redehabitater tæt på kysten.
Hvis man undlader Marus Beikes personlige tolkninger, er ingen af de faktuelle oplysninger i hans artikler dog i konflikt med en teori om, at mellemskarv af asiatisk herkomst kan have spredt sig op igennem Europa og gradvist fortrængt storskarven måske på en periode på over 500-1.500 år.

En voksen skarv æder i snit cirka et halvt kilo fisk om dagen – og er heldt vild med fx aborrer, som du ser her. Foto: Adobe Stock
Direkte eller diffuse spredningsteorier for mellemskarv fra Asien til Europa ikke i modstrid
De to skitserede modeller for menneskelig spredning af asiatiske mellemskarv til Europa – enten diffust eller direkte – er som sådan ikke i konflikt, og den ene udelukker ikke den anden; selv om domesticerede asiatiske mellemskarv med stor sandsynlighed kan have været kommet til Europa via handel gennem mange år over en bred front af transasiatiske handelsnetværk, udelukker det ikke, at der samtidig også kan have været specifikke direkte transporter bestilt eller foretaget af europæere, hvor vi pt bare ikke har fundet dokumentationen for det endnu. Det første nedskrevne eksempel, som illustrerer dette, er en hollandsk udsending, der allerede i 1655-57 i Kina forsøger at købe en fiskeskarv (Gudger 1926). Ejeren ville i det tilfælde ikke sælge, men det er oplagt, at interessen for “fiskeskarv” har været der fra Europæisk side, og at der sagtens kan være historiske dokumenter, som beviser direkte fragt af fiskeskarv fra Kina til Europa, som enten er gået tabt eller bare pt ikke blevet opdaget endnu.
I takt med øget digitalisering af gamle dokumenter kombineret med hastigt forbedrede AI-oversættelser og søgninger på originalkilder fra Eurasien og Østafrika, hvortil mange af de maritime silkevejsruter også førte, er det ikke usandsynligt, at der i fremtiden kan dukke meget mere ny information frem, som kan kaste nyt lys over eventuel handel med fiskeskarv fra øst mod vest.
Silkevejen – diffus human spredning af mellemskarv fra Asien til Europa
Da skarvfiskeri som nævnt var helt almindeligt blandt fattige i hele Kina og asiatiske mellemskarv samtidig blev handlet vidt og bredt i alle Kinas provinser plus sikkert også mange andre steder i Asien, må der have været enorme mængder af domesticerede mellemskarv i fjernøsten – måske allerede fra 500-1.000 tallet eller langt før. Med så mange tamskarv samt heraf følgende mulighed for undslupne fugle, har de vilde bestande af mellemskarv i Asien sikkert også båret på mange domesticerede gener for ekvilibristiske, men kunstigt fremavlede superfiskeegenskaber.
Diffus spredning i tid og rum, hvor handel mellem nærliggende landsbyer har spredt domesticerede fugle eller gener båret af vilde fugle længere og længere vestpå, er derfor i min optik yderst realistisk. Det kan have foregået få kilometer af gangen – enten til fods eller med skarverne på en lille båd. Undervejs og over årene kan løsslupne tamfugle have blandet sig med vilde fugle – og etableret småbestande. Fugle herfra har måske været fanget ind og trænet igen, ført videre – og så videre, hvilket kan være sket kontinuerligt over mange hundrede eller måske over tusinde år. Det kan være sket via et utal af parallelle spredningsveje, forbundet med nogle af de NS gående handelsruter, der førte frem til hovedsporene af Silkevejen i højlandet: Herfra kan de oplagt være transporteret med menneskelig hjælp det sidste stykke langs Silkevejens mange forgreninger – oplagt til eksempelvis oaser og vådområder i Tadsjikistan, Kirgisistan og grænseområdet mellem Xinjian og Kasakhstan, hvor fuglene kan have kommet sig med rigelige mængder vand og fisk. Det kan både være sket fra de nordlige ruter samt via den sydlige Silkevej gennem Gangesdalen og op over Karakorum Passet ned til det samme område.
Netop en gradvis spredning via mennesker over kortere distancer har måske rent lavpraktisk været nemmere end lange uafbrudte transporter, da det selvfølgelig har været lettere at holde skarverne i live og god form med føde og vand, jo flere pitstops, der har været undervejs. He (2009) nævner dog, at især unge skarvers kost ofte blev suppleres med tofu, der har været en kendt spisevare i Kina i cirka 2000 år. Tofu kan således oplagt have været brugt til at holde skarverne i live på længere transporter, hvor netop lav vægt, plads og holdbarhed har været altafgørende. Det kan nemlig tørres, holde sig i helt op til et år – og derefter kvældes i vand, inden det spises. Netop disse egenskaber for tofuen kan oplagt have gjort det lettere at fragte skarv længere stræk gennem tørre områder, fordi man selv ved den mindste kilde, bæk eller oase uden fisk, vil have haft muligheden for at supplere foder eller fodre fuglene med kvældet lufttørret tofu, så de overlevede transporten.
Fra de centralasiatiske oaser og vådområder kan mellemskarverne enten være ført og handlet videre – og/eller have dannet vilde bestande fra undslupne fugle, der gradvis har spredt sig vestover gennem vådområdekorridorer kombineret med kortere flyvninger over tørre områder for at komme videre vestover de vestasiatiske stepper til nye attraktive levesteder. På den måde kan de asiatiske mellemskarv have været nået Det Kaspiske Hav – samt det, der meget vel kan have været østkanten den oprindelige storskarvs udbredelsesområde – repræsenteret ved subfossile skarvfund i Aserbajdsjan (Tyrberg 1998). En anden oplagt vej vestpå er landtransport kombineret med den maritime silkevejs mange mindre etaper der via Indiens og Mellemøstens havne gradvist kan have ført asiatiske mellemskarv til fx Det Røde Hav og Egypten – hvor den har ramt den oprindeligt sydøstlige udbredelse for storskarven, hvilket som nævnt er underbygget af Pleistocæne fund fra Egypten og Holocæne fund fra Saudi Arabien.

Der er i dag cirka 30.000 ynglende skarvpar i Danmark.
Mellemskarven indvandrer fra øst og erobrer Europa
Hvis teorien holder, og den asiatiske mellemskarv gradvist skulle have erobret Europa fra sydøst mod vest og nord som enten som ynglefugl og/eller resident, så må den asiatiske mellemskarv have haft en helt særlig trumf. For hvordan kunne den eventuelt være i stand til at udkonkurrere den noget større storskarv på sin vej vestover? Ofte er det jo sådan, at større dyr af samme type er dominante overfor mindre dyr af samme type. Svaret kunne oplagt ligge i, at man i måske over 2.000 år på kunstig vis har selekteret kraftigt for at fremavle de mest effektivt fiskende mellemskarv. Studier har da også vist, at en forøget fourageringseffektivt ikke overraskende giver bedre ynglesucces (Daunt et al. 2007) – og dermed oplagt også bedre mulighed for at ekspandere sin udbredelse ved at påføre storskarven hård interspecifik konkurrence.
Domesticerede mellemskarv i Asien var tvunget og dresseret til fange mange flere fisk end vilde fugle, fordi de først skulle fange konsumfisk til deres herre – og derefter byttefisk til sig selv og deres unger. He og Grémillet (2009) refererer baseret på omfattende kinesiske litteratur- og feltstudier, at skarven ofte skulle fange omkring otte fisk, før de selv fik én – og det var typisk en af de mindre. De kinesiske fiskeskarv har altså rent jagtmæssigt skulle præstere betydeligt mere end vilde skarv, som ”bare” skulle fange fisk til sig selv og deres unger. Præcis som med alle andre dyr, der er domesticeret af mennesket gennem årtusinder, har man selvfølgelig valgt de bedste mellemskarv til avl, hvorved man i hundredevis af generationer målrettet har selekteret for at give de asiatiske mellemskarv sine næsten overnaturligt effektive fiskeevner: Det kan oplagt have givet den de egenskaber, som efterfølgende kan have gjort dem i stand til at udkonkurrere storskarven.
Østersøen – da Storskarven forsvandt og mellemskarven overtog
Det udbredelsesmønster vi p.t. ser, hvor mellemskarven har rykket længere og længere vest og nordpå gennem Europa, stemmer godt overens med teorien om, at den asiatiske mellemskarv fra øst gradvist kan have erstattet den oprindelige europæiske storskarv, hvilket er i tråd med tidligere studier (Stevart 2002 samt Ericson og Carrasquilla 1997).
Sidstnævnte har på basis af store morfometriske studier af skarvknogler fra Østersøområdet kunne konstatere, at der i perioden op til 13-1500 tallet samt måske senere endnu senere – udelukkende var storskarv i Østersøområdet med det sidste dokumenterede fund vist på et maleri fra 1695 (Olburs 2008). Ericson og Carrasquilla kæder storskarvens uddøen sammen med, at saltholdigheden i Litorinahavet faldt: ”Maybe the salinity sank below some treshold value after 1500AD causing the P. c. carbo to cease breeding in the baltic. Simultaneously, the environment slowly transformed into that prefered by P. c. sinensis, which seems to have colonized the region soon after.” Det passer dog ikke godt sammen med palæosalinitets-modeller og proxyværdier for saltholdigheden i Østersøen i samme epoke (Westman et al. 1999). De viser nemlig, at saltholdigheden har været den samme i Østersøen siden 500-tallet, og selv da den toppede i Østersøen cirka 5.000-6.000 BP, har den ikke har været for høj til en mellemskarv, hvis man fx kigger på, hvor den normalt yngler og fouragerer nu – både i Atlanten og ved oceanisk saltholdighed i Kina. Så mellemskarvens eventuelle konkurrencefordel over for storskarven er næppe relateret til lavere saltholdighed, da man i givet fald ville forvente stigende procentdel mellemskarv i knoglefundene op igennem Subboreal (5.000-2.500 BP) og Subatlantikum (2.500 BP) op til mellemskarven overtager dominansen som ynglefugl i Østersøområdet, hvilket jo ikke er tilfældet. Hvis saltfaktoren vitterlig var en afgørende faktor for de to skarvunderarter, forekommer det også mærkeligt, at storskarven tilsyneladende den dag i dag har det fint med at overvintre og fouragere i selvsamme saltholdighed, som de forlod i tidligst 13-1500-tallet – måske først helt hen i 17-1800 tallet. Det kunne tyde på, at overgangen fra oprindelig storskarv i Østersøområdet til gradvist øget dominans af mellemskarv fra omkring 17-1800-tallet på gydepladserne, i virkeligheden skyldes andre faktorer – eksempelvis, at det ”tilfældigvis” er netop dette tidspunkt, hvor mellemskarven i sin gradvise erobring nordpå gennem det europæiske kontinent er kommet frem til Østersøen.
Mellemskarven blev første gang registreret i Danmark, Sverige, England, Finland, Baltikum og Norge fra 1800-tallet og frem til slutningen af 1900-tallet. At de første underartsbestemte eksemplarer af mellemskarv netop er fra disse år, siger ikke nødvendigvis så meget om det helt præcise ankomstår, men kan meget vel været et artefakt af, at mellemskarven først blev defineret som underart i 1798 – med efterfølgende stigende awareness om, hvorvidt det var den ene eller anden underart af skarv, der blev iagttaget. Selv med de bedste kikkerter nu til dags og med et trænet øje kan de to underarter været meget svære at kende fra hinanden.

Selv for trænede ornithologer er det svært at kende forskel på mellem og storskarv – og det er heller ikke muligt at kende forskel på enkelte knoglefund, fordi der er så stor forskel i størrelsen af han og hun – med et stort overlap imellem de to arter. Kun ved større morfometiske studier med et stort statistisk grundlag kan man udtale sig om hvilken art, der er tale om i et givent område.
Allopatrisk underartsadskillelse af skarv mere sandsynligt end sympatrisk
I dag lever de to underarter storskarv og mellemskarv sympatrisk i Europa – dvs i samme område uden en impassabel naturlig geografisk spredningsbarriere. Antager man, at mellemskarven vitterlig var oprindelig i Europa og havde været her i fx hundredetusindvis af år, så ville vi også skulle kunne forklare opretholdensen af underartsadskillelsen over tid ud fra noget – eksempelvis præferencer for forskellige habitater.
Hvis salt/kyst vs fersk inlandshabitat var præmissen for en underartsadskillelse af mellem- og storskarven, ville vi også forvente: 1) Dannelse af to lignende sikre og lige så forskellige underarter i Kina. 2) Hvis stor- og mellemskarv vitterlig havde sameksisteret naturligt i Europa i fx hundredetusinder af år – stabilt opretholdt som underarter over tid og kun adskilt af nichedelingen mellem salt og ferskvandspræference – så ville vi forvente, at arterne ikke hybridiserede, men derimod bevægede sig væk fra hinanden genetisk. Begge dele er ikke tilfældet idet: 1) Der er kun én sikker underart i Kina – nemlig mellemskarven, der både findes inde i landet i ferskvand og langs de østasiatiske kyster, hvor den fouragerer i områder med en saltholdighed op til 30-40 promille (Huang 2025). ”Underarten” Japanese great cormorant – Phalacrocorax carbo hanadae, som er nærmest identisk med mellemskarven, er normalt slået sammen med mellemskarv som sinensis/hanedae (EBird), eftersom der som antydet er uklarhed om, hvorvidt det rent faktisk er en underart. 2) Nye genetiske studier viser introgressiv hybridisering (Winney et al. 2000 og Grøndahl og Johnsen 2024) mellem stor- og mellemskarv i Norge og Storbritannien, hvilket ikke bidrager til at opretholde underarterne, men snarere at udvande dem over tid. Grøhndahl og Johnsen (2024) konkluderer således: ”Our results suggests that geneflow is more common from sinensis into carbo than vice-versa…”
Det øjebliksbillede, som vi ser i 2026, med hovedparten af mellemskarverne på fastlandet samt ved ferske- og brakvandsområder samt majoriteten af storskarverne langs Atlanterhavskysterne, kan altså blot være et artefakt af, at den østlige mellemskarv ved menneskets hjælp har ekspanderet vestover samt V og NV på gennem Europa via interspecifik konkurrence.
Mellemskarven – ikke-hjemmehørende og invasiv i Europa?
Med afsæt i den nuværende viden om skarven tyder alt i min optik p.t. på, at der er langt større videnskabeligt baseret evidens for, at den europæiske mellemskarv er ikke-hjemmehørende og oplagt invasiv – end der er for, at den skulle være oprindeligt hjemmehørende.
En endelig afklaring af mellemskarvens spredningsmønster og status som hjemmehørende eller ikke-hjemmehørende i Europa kræver et omfattende genetisk studie – optimalt set med aDNA på subfossile fund af skarv i hele Eurasien samt DNA-tests på nutidige skarv fra hele udbredelsesområdet. Men – det er næppe simpelt, for hvor eventuel målrettet import af asiatiske mellemskarv, som foreslået af Olburs (2008), sikkert vil vise en genetisk flaskehals, så vil en mere diffus human-medieret spredning over en bred front i tid og rum sandsynligvis give et langt mere udvandet genetisk billede.
Indtil mellemskarvens spredningshistorik er endeligt afklaret med DNA analyser, kan der forvaltningsmæssigt argumenteres for et forsigtighedsprincip, hvor konsekvensen p.t. bør være en kraftig regulering af mellemskarven i hele Europa, så den 1) kommer ned på et bestandsniveau, der hverken sætter den sandsynligvis oprindelige storskarv i fare for irreversibel genestisk forurening/udvanding og 2) ikke påvirker eksisterende hjemmehørende og især sårbare fiskearter negativt. Dette – samt spørgsmålet om, hvorvidt EU’s Fugledirektiv bør revideres, og hvorvidt skarven rent forvaltningsmæssigt bør katerogiseres som invasiv – er omdrejningspunktet for den tredje og sidste artikel i serien, der kommer snart på fiskogfri.dk.
LITTERATUR, DER BELYSER MELLEMSKARVEN SPREDNINGSHISTORIK:
Beike, M: “The history of Cormorant fishing in Europe”, Die Vogelvelt 133: 1-21 (digital engelsk version), 2012.
Beike, M: “Phalacrocorax carbo sinensis in Europe – indigenous or introduced?” Ornis Fennica 91: 48-56. 2014.
Berrow et al: ”Cormorants Phalacrocorax carbo breeding in Special Protection Areas in the Shannon Estuary and adjacent waters”, Irish Birds 47: 1–8, 2025.
Bliedtner, M. et al: “Holocene Temperature Variations in Semi-Arid Central Mongolia—A Chronological and Sedimentological Perspective From a 7400-year Lake Sediment Record From the Khangai Mountains”, Sec. Quaternary Science, Geomorphology and Paleoenvironment, Vol. 10, 2022.
Boev, Z.N: “The Holocene avifauna of Bulgaria (A review of the orni-archeological studies)”, Historia naturalis bulgarica, 6, 59-81, 1996.
Boev, Z.N: “Fossil birds in the National Museum of Natural History, Sofia: composition, development and scientific value. Zool. Med. Leiden 79-3 (4), 35-44, 30-ix. 2005.
Bregnballe, T og Gregersen, J: ” Udviklingen i ynglebestanden af Skarv Phalacrocorax carbo sinensis i Danmark 1938-1994#, Dansk Om. Foren. Tidsskr. 89: 119-134, 1995.
Browne, T: “An account of birds found in Norfolk. In Sir Thomas Browne´s works, Vol. 4 (ed. Wilkin, S) 311-323, Pickering, London.
Bulleid, A., & Gray, S. G: “The Glastonbury Lake Village”. Glastonbury Antiq. Soc. 2: 632-637, 1911-17
Daunt et al: “Older and wiser: improvements in breeding success are linked to better foraging performance in European shags”, Functional Ecology, vol. 21,3. 2007.
Ericson, G, P og Carrasquilla, H: ”Subspecific identity of prehistoric Baltic cormorants Phalacrocorax carbo”, Ardea 85: 1-7. 1997
Galimova, D, N et al: “Bird Remains from the 5th – 17th Century AD Archaeological Sites in the Middle Volga Region of Russis”, International Journal of Osteoarchaeology, Int. J. Osteoarchaeol., 2024.
Grøndahl, F, A og Johnsen, A: ”Combining biometrics and genetics to distinguish two subspecies of the Great Cormorant Phalacrocorax carbo carbo and P. c. sinensis at an inland lake in southeast Norway. Ornis Norvegica 47: 25-40, 2024.
He, L og Grémillet, D: ”A review of the current knowledge and status of tame Great Cormorants Phalacrocorax carbo in China”, BirdingASIA, 12, 103-106, 2009.
Holt et al: ”An Update of Wallace’s Zoogeographic Regions of the World”, Science 339, p. 76. 2013.
Huang, S et al: “Long-term monitoring data inform conservation strategies for waterbirds in the abandoned tropical salt pans of Budai, southwestern Taiwan”, Global Ecology and Conservation, 62:e03736, 2025.
Liang, Q. et al: ”Subsistence strategies in the Late Neolithic and Bronze Age in Nenjiang River Basin: A zooarchaeological and stable isotope analysis of faunal remains at Honghe site, Northeast China. International Journal of Osteoarchaeology, 1–14. 2023.
Monchot, H:” Arabian Animal Remains from the Bronze Age to the Historical Period: a State of Research”, In Athirat: Journal of Ancient Atabia 2 (2026) 165–196, 2026
Nomokonova, T:” A 9,000 Year History of Seal Hunting on Lake Baikal, Siberia: The Zooarchaeologyof Sagan-Zaba II, 2015.
Olburs, C: “The chinese cormorant Phalacrocorax carbo sinensis Blumenbach 1798 – An attempt to understand a complex biological question”, 2008.
Stevart, J, R: “Sea-birds from coastal and non-coastal, archaeological and“natural” Pleistocene deposits or not all unexpected depositionis of human origin”, Acta zoologica cracoviensia, 45(special issue): 167-178, Kraków, 2002.
Tyrberg, T. ”Pleistocene birds of Palearctic – a catalouge”, 1998.
Wang et al, “Ancient DNA insights into Neolithic bone-tool use on the Tibetan Plateau, Journal of Archeologival Science , article 106183, Vol. 177, 2025.
Westman et al: “Salinity change in the Baltic Sea during the last 8,500 years: evidence, causes and models”, Oceanus Havsundersökningar, Göteborg, 1999.
Winney, B, J er al: “The subspecific origin of the inland breeding colonies of the cormorant Phalacrocorax carbo in Britain”, Heredity 86, 45-52, 2001.
Zeder, M & Spitzer, M: ”New insights into broad spectrum communities of the Early Holocene Near East: The birds of Hallan Çemi“,Quaternary Science Reviews 151(2):140-159, 2016.
NOTER
– Ericson og Carrasquilla (1997) nævner tre ”sinensis” knogler fra Bulgarien (3.000 BP), der er anvendt til at belyse, hvorvidt mellemskarven kan have ændret størrelse over tid. Disse dokumenterer dog ikke oprindelig mellemskarv i Europa, fordi sikker bedømmelse kan kun ske ved større morfometriske studier som afklaret i del 1, hvilket sandsynligvis også er årsagen til, at man i ingen bulgarske subfossile samlinger finder Phalacrocorax carbo knogler bestemt på underartsniveau (Boev 1996 og 2005).
– Beike (2014) argumenterer for, at et skarvfund inde i Europa (Brehm, 1824) senere identificeret af Claud B. Ticehurst (1923) var identisk med Blumenbachs typeeksemplar af sinesis. Diskussionen om hvorfor mellemskarven har fået underartsnavnet sinensis, der betyder ”den kinesiske skarv”, er i min optik baseret på anekdotisk tvetydighed, der er svær at konkludere noget ud fra. Oprindelsen til navnet sinensis er reelt uden betydning – idet der er så god evidens for, at den kan have spredt sig ved menneskelig hjælp til Europa på flere forskellige måder – uanset hvad dens latinske navn er.
sep 3, 2026 | Artikler, Miljø og debat, Nyheder
Forvaltningsgrundlaget for mellemskarven i Danmark er, at den er en oprindelig del af den danske natur. Forestil dig, at der faktisk slet ikke er dokumentation for dette – men derimod bedre evidens for det modsatte? Meget tyder på, at det kan være tilfældet, hvilket potentielt set kan ændre fundamentet og præmissen for skarvforvaltningen i sin grundvold. Læs hvorfor i denne artikelserie.
AF JENS BURSELL, BIOLOG, FOTO JENS BURSELL OG LARS LAURSEN
HJEMMEHØRENDE ELLER EJ? Indenfor naturbevarelse er disse begreber helt centrale. Årsagen er, at det er altafgørende for den grad af beskyttelse, som en art kan forvente at få – eller omvendt, fordi en art pr. definition ikke kan kaldes invasiv, hvis den er hjemmehørende (Ministeriet for Grøn Trepart). For mellemskarvens vedkommende, er lige præcis denne diskussion helt essentiel at tage. Her kan man nemlig dokumentere de store biologiske (Jepsen, N et Al, 2014; Jepsen, N et Al, 2026; Fiskepleje.dk), biodiversitetsmæssige (Verliin et Al, 2026) og økonomiske skader (FAOTU, 2026), som arten kan forvolde naturen og samfundet, men samtidig have svært ved at handle på det, fordi den ifølge forvaltningsgrundlaget er hjemmehørende, hvormed den pr. definition ikke kan være invasiv.
Uden en revideret skarvdiskussion, hvor der tages højde for de emner og nye vinkler på skarvdebatten, som artiklen (del 1-3) her belyser, diskuterer hverken naturelskere, fagfolk, forskere, interessenter, politikere, embedsværk eller forvaltningen på et oplyst grundlag.
Hele den danske og europæiske skarvdiskussion drejer sig om arten skarv (Phalacrocorax carbo), der inddeles i to underarter, som på dansk hedder storskarv (Phalacrocorax carbo carbo) og mellemskarv (Phalacrocorax carbo sinensis). Det er især sidstnævnte – altså underarten sinensis, som udgør et massivt problem for de danske og europæiske fiskebestande (EIFAAC, 1925).
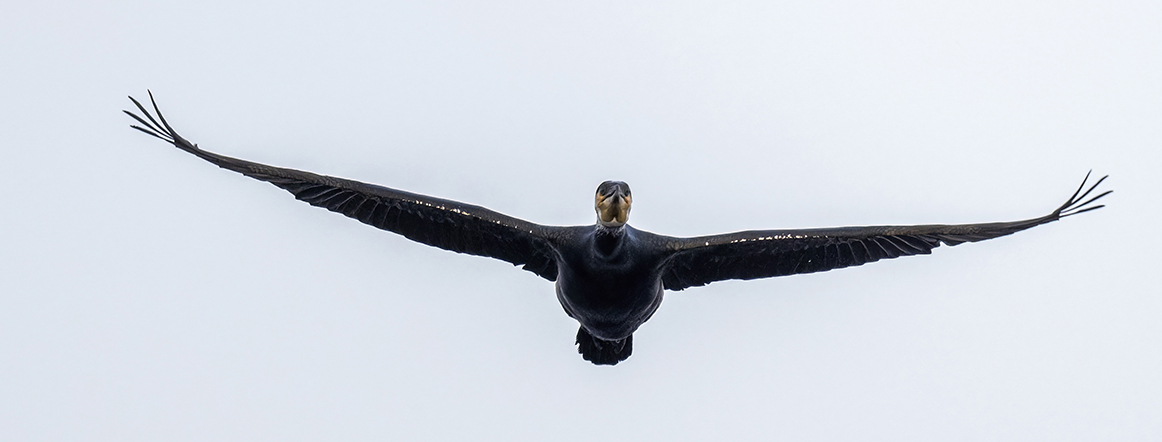
Skarver flyder typisk op til 20 kilometer væk fra deres reder efter føde – men kan jage betydeligt længere væk også.
Er mellemskarven hjemmehørende i Danmark?
At afklare de reelle forhold omkring mellemskarvens autenticitet i Danmark er ikke – som nogen måske betragter det – en kamp mod naturen, men derimod rettidig omhu, for at sikre bedre natur, sunde, naturlige dyrebestande samt en højere biodiversitet i Danmark generelt. Men nu til sagens kerne.
Der er normalt fire-fem logiske niveauer af dokumentation, når man diskuterer, hvorvidt en art er hjemmehørende – samt hvordan man ud fra en evidensbaseret forvaltning skal lovgive om en arts beskyttelse – eller eventuelt det modsatte:
- Hvad viser kvartærzoologien om jordfundne subfossiler, som eventuelt dokumenterer en oprindelig tilstedeværelse i et givent område?
- Hvad siger genetiske aDNA studier på fx subfossile knogler om artens udbredelse gennem tid og rum? Og findes der nutidige DNA analyser, der belyser diskussionen?
- Hvad viser kvartærzoologien om subfossiler og fossiler, som dokumenterer artens tilstedeværelse og spredning på verdensplan i forhistorisk og historisk tid?
- Er der historisk dokumentation – tekster eller afbildninger, der evt verificerer eller bidrager med evidens for artens tilstedeværelse og spredning?
- En sammenfatning hvor man ud fra et evidensbaseret udgangspunkt, vurderer hvilken status, man vil give arten som enten hjemmehørende, ikke-hjemmehørende og eventuelt invasiv.
At sammenstille den tilgængelige viden samt vurdere gamle og nye hypoteser, der belyser mellemskarvens autenticitet – eller mangel på samme – i Danmark samt resten af Europa, er en kompleks og omfattende diskussion. Jeg har derfor valgt at opdele artiklen her i tre dele. Den første beskæftiger sig med, hvorvidt det kan dokumenteres, om skarven er oprindeligt hjemmehørende i Danmark med afsæt i enten subfossile fund eller dokumentation baseret på DNA (1-2). Den anden del af artiklen fokuserer på, hvordan kvartærzoologiske fund set i et historisk, zoogeografisk og spredningsmæssigt perspektiv belyser autenticiteten af mellemskarv og storskarv i Danmark og Europa (3-4). Del tre er en sammenfatning af, hvad der samlet set taler for og imod skarvens status i Danmark som enten hjemmehørende, ikke-hjemmehørende eller invasiv art (5).
Ingen kvartærzoologisk dokumentation for oprindelige mellemskarv i Danmark
Trin 1 er at faktatjekke, hvorvidt det kan dokumenteres, om der oprindeligt har været mellemskarv i Danmark:
Jeg har talt med Anne Birgitte Gotfredsen, Ph.d og seniorforsker fra Globe Institute, Københavns Universitet, som i en årrække har studeret jordfundne (subfossile) fugleknogler fra danske og grønlandske forhistoriske aflejringer især fra perioden efter seneste istid.
Storskarven og mellemskarven ligner hinanden ekstremt meget både i størrelse og morfologi – samt har en så stor kønsdimorfi (han størst og hun mindst), at det er umuligt at se forskel på knoglerne fra en storskarv hun og mellemskarv han. Derfor var det oplagt at stille Anne følgende spørgsmål: Er det muligt med 100 % sikkerhed at adskille fund af mellemskarv fra fund af storskarv? Kan man eksempelvis med sikkerhed kende en voksen mellemskarv hun fra en ung storskarv hun?
– Det er ikke muligt med sikkerhed at skelne alene på knoglerne, hvis man har en enkelt knogle, svarer hun. – Har man mange måltagne knogler kan man lave statistik på det og bruge sandsynligheder, hvilket man har gjort i studiet ”Subspecific Identity of prehistoric baltic cormorants Phalacrocorax carbo af Ericson og Carrasquilla fra 1997” (RED: Her konkluderes det, at alle fund i Østersøområdet er storskarv og ikke mellemskarv, men den vender vi retur til flere gange). Vi har ikke lavet en lignende biometrisk undersøgelse på danske fund.
– Vi har et par stykker, som vi mistænker for at være fra c.sinensis– men det er forholdsvis små knogler og ikke sikre bestemmelser, som ikke er tjekket via aDNA. De drejer sig om en tibiotarsus (RED: knogle fra fuglens ben) fra en jernalderboplads Åsum på Fyn og en humerus (RED: knogle fra fuglens vinge) fra Trørød ved Vedbæk fra bronzealder/jernalder. Hvis eventuel indvandring/indførelse af mellemskarv skal belyses ud fra knoglefundene skal et større genetisk studie til, da morfometri alene ikke kan besvare spørgsmålet. Især vil middelalder- og renæssancefund være spændende at inddrage (læs mere om genetiske undersøgelser nedenfor).
Allerede her står det klart, at der p.t. ingen dokumentation er for, at mellemskarven skulle have været en oprindelig dansk fugl siden stenalderen. Men – vi kan jo lige så godt få en snak med en af Danmarks førende og Europas mest citerede skarvforskere – biolog Thomas Bregnballe, seniorforsker på DCE-Institut for Ecoscience, Aarhus Universitet. Thomas har været ankermand i flere af de største skarvstudier i Danmark – blandt andet kernereferencen på mellemskarv i Danmark – ”Udviklingen i ynglebestanden af Skarv Phalacrocorax carbo sinensis i Danmark”.
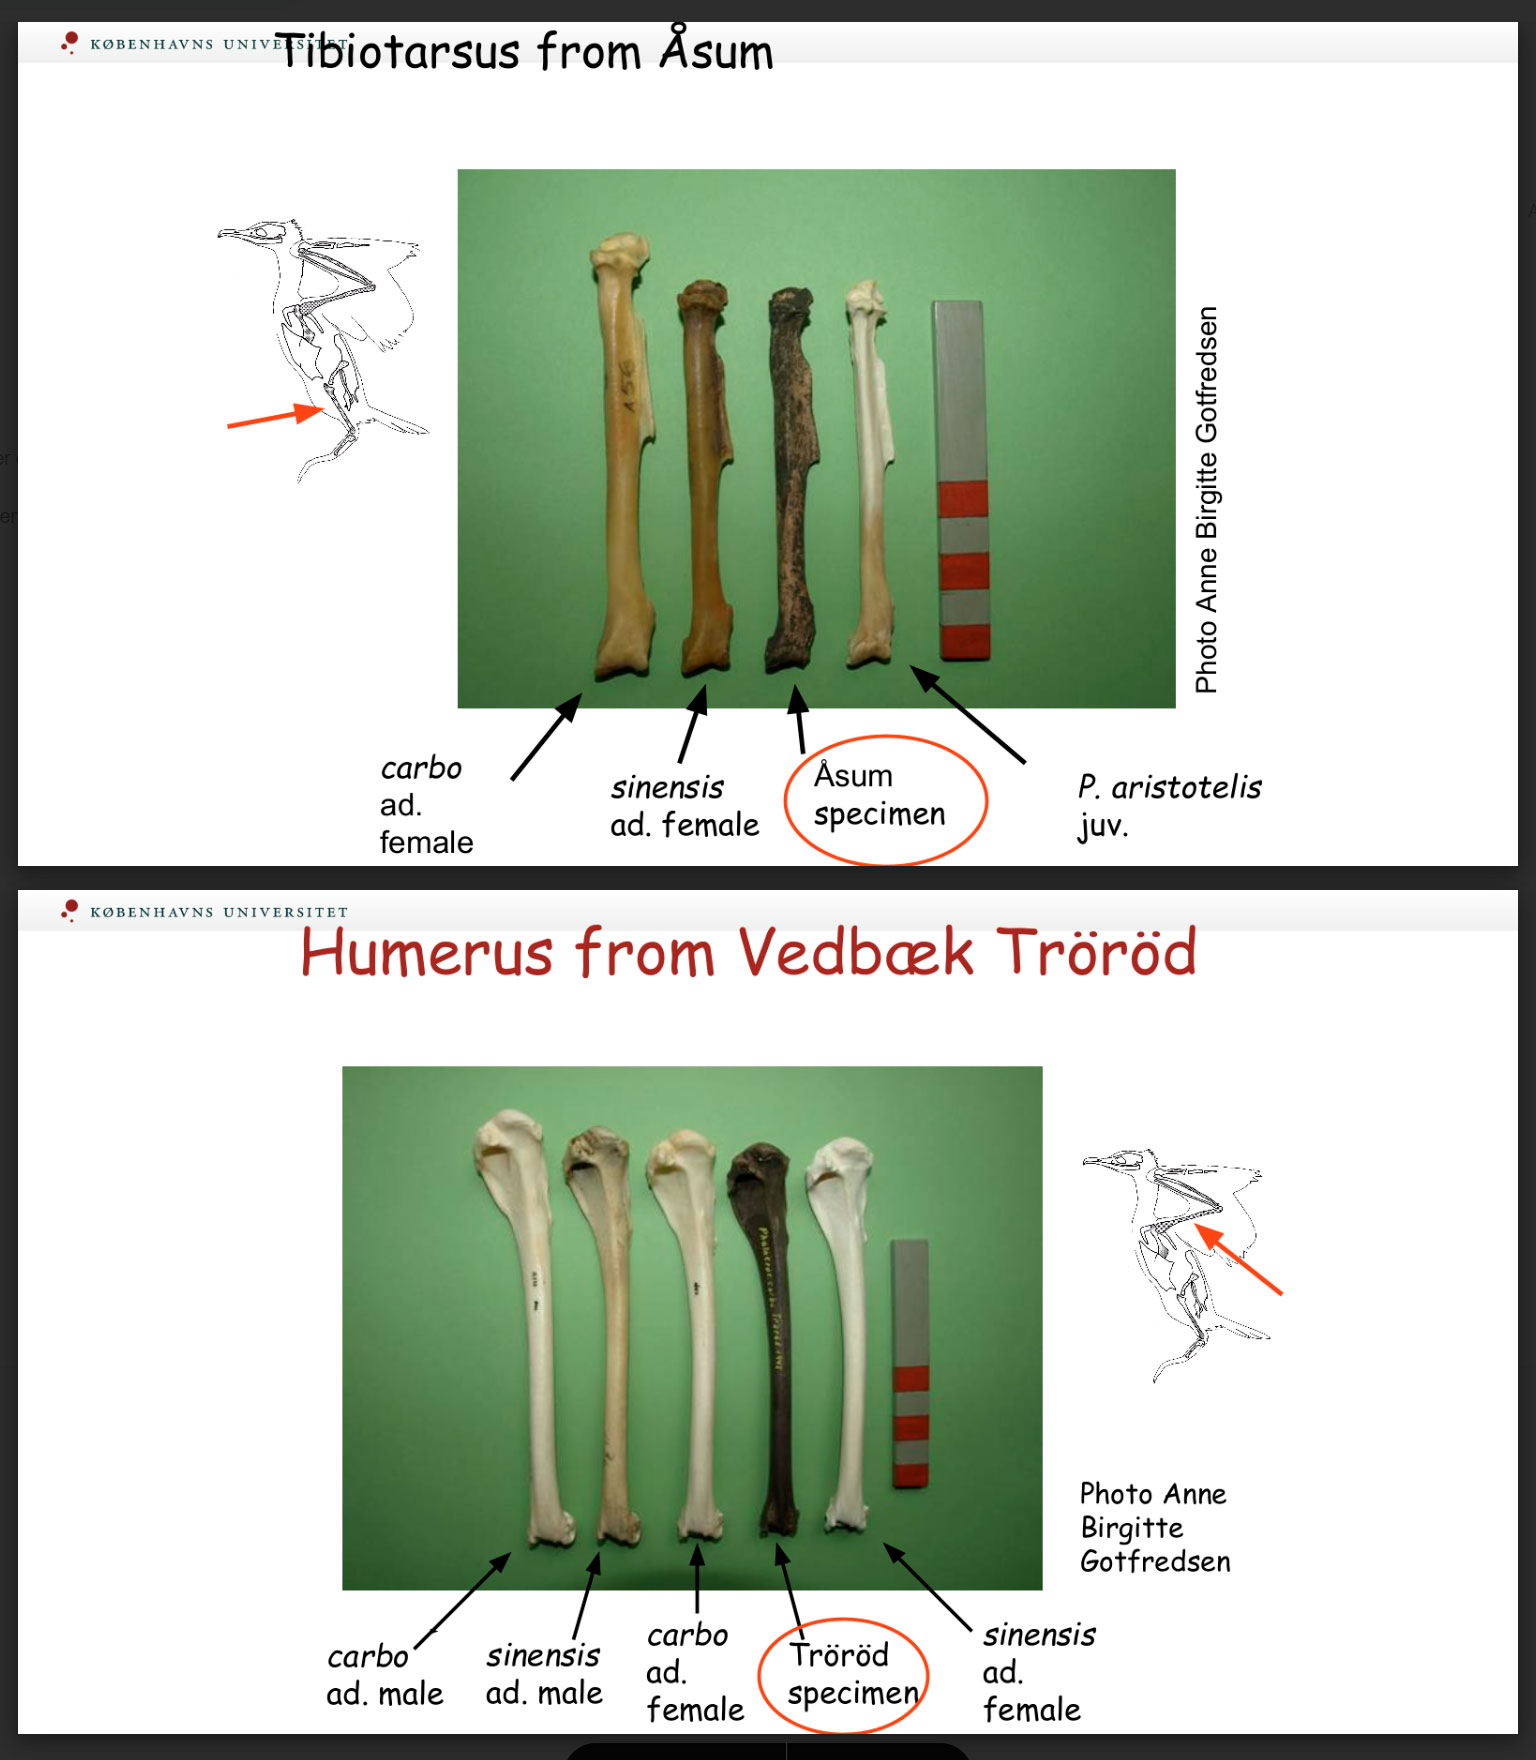
Bronze/Jernalderfund af skarvknogler fra Dannmark, hvor en sikker identifikation krærver enten store morfometriske undersøgelser baseret på mange individer – eller et aDNA studie. – Selvom de to eksemplarer virker små, kan vi som nævnt ikke være sikre på om der er tale om mellemskarv, siger kvartærsoolog Anne Birgitte Gotfredsen. Slide: Kristiina Mannermaas.
Skarven er en fantastisk jæger, der dykker og fanger fisk med stor ekvilibrisme.
Hvad siger skarvforskeren Thomas Bregnballe?
Da jeg løb igennem Bregnballes kilder til studiet fandt jeg intet, der efter nutidige metoder og standarder gav sikker dokumentation for en naturlig forekomst af mellemskarv i Danmark. Derfor har jeg stillet ham følgende spørgsmål:
I jeres studie “Udviklingen i ynglebestanden af Skarv (Phalacrocorax carbo sinensis) i Danmark 1938-1994″ skriver du sammen med din medforfatter Jens Gregersen at “For fuldstændighedens skyld gives her et resume af udviklingen før Skarvens genindvandring i 1938, baseret på oplysninger givet i litteraturen (Helms 1940, Madsen 1946, Sparck 1952, Løppenthin 1967, Coomans de Ruiter 1966, Hansen 1980, Knief & Witt 1983). De to underarter sinensis og carbo har antagelig optrådt i Danmark gennem de sidste 7000 år. Knoglerester af begge er fundet i køkkenmøddinger fra (især) yngre stenalder. Fra midten af 1500-tallet har vi skriftlige vidnesbyrd om ynglende Skarver i Danmark (formodentlig sinensis). Tilsyneladende ynglede Skarven ikke i landet gennem en længere periode i 1700-tallet, men omkring 1775 indvandrede den igen”.
Som læser af dit studie opfatter jeg – og nok også mange andre, dette som om, at du på basis af “(Helms 1940, Madsen 1946, Sparck 1952, Løppenthin 1967, Coomans de Ruiter 1966, Hansen 1980, Knief & Witt 1983)” selvom du også bruger ordet “antagelig” – i 1995 sluttelig konkluderer at: “Knoglerester af begge er fundet i køkkenmøddinger fra (især) yngre stenalder”. Implicit skriver eller signalerer du dermed – så vidt jeg kan se – at mellemskarv dokumenterbart er en oprindelig dansk siden yngre stenalder art baseret på disse knoglefund, hvilket måske kan have givet anledning til misforståelser. Ud fra hvilke af de refererede studier (Helms 1940, Madsen 1946, Sparck 1952, Løppenthin 1967, Coomans de Ruiter 1966, Hansen 1980, Knief & Witt 1983 ( – eller andre studier du er stødt på)) konkluderer I i 1995, at “Knoglerester af begge er fundet i køkkenmøddinger fra (især) yngre stenalder”?
– Jeg har desværre ikke med kort frist mulighed for at finde og gennemgå eksisterende publikationer, som fremlægger beskrivelser af knoglerester fra skarver fundet i køkkenmøddinger, svarer Bregnballe.
Er der sikker dokumentation for, at mellemskarven (sinensis)er en oprindelig dansk fugl baseret på a) Kilderne i ovennævnte studie publiceret i 1995 vedrørende fund fra køkkenmøddinger b) andre videnskabelige studier eller ny viden, du er bekendt med, der er kommet frem før eller siden 1995?
– Nej, jeg er ikke p.t. bekendt med, at der ud fra fund af knoglerester i køkkenmøddinger findes dokumentation for, at mellemskarven dengang ynglede i Danmark. Derimod tyder de studier, som jeg kender til, at vi dengang havde storskarver ynglende her i Danmark.
Har du lyst til at uddybe din konklusion?
– Det vil være relevant at få gennemgået litteraturen. Da der er overlap i knoglestørrelserne for de to underarter, kan det være vanskeligt at skelne mellem de to underarter udelukkende ud fra opmåling af knoglerester. Men jeg mener at kunne huske, at den danske zoolog Ulrik Møhl, der målte på skarvknogler fundet i køkkenmøddinger, nåede frem til, at de fundne knogler sandsynligvis stammede fra skarver tilhørende underarten storskarv. Jeg husker, at svenske forskere publicerede en artikel i 1997, hvor de ud fra mange opmålinger af knoglerester fra forhistorisk tid (repræsenterende mange svenske lokaliteter) fandt frem til, at det frem til 1500-tallet eller senere var storskarver, som levede i Sverige, hvorefter mellemskarven kom til (Ericson, G, P og Carrasquilla, 1997). Det vil være interessant at få undersøgt, om det via DNA-analyser er muligt at få belyst, om og hvor mellemskarven ynglede i Europa for 500-7.000 år siden. Som jeg vurderer det, ser det ud til, at det for 7.000 år siden var storskarven, som var tilstede her i det nordlige Europa, slutter Thomas Bregnballe.
Jeg er helt enig i Bregnballes betragtninger, eftersom det har været præcis det, som jeg har ræsonneret mig frem til på basis af samme litteraturkilder under researchen til denne artikel – og årsagen til, at jeg har rejst de spørgsmål, som du ser ovenfor. Alt tyder altså på, at der p.t. ikke er kvartærzoologisk dokumentation for, at mellemskarven skulle have været en oprindeligt hjemmehørende dansk art. Men hvad med genetikken?
Skarverne optræder ofte i flokke der kan variere i størrelse på til mange hundrede individer.
Ingen genetisk dokumentation for at mellemskarven er hjemmehørende i Danmark
Som nævnt ovenfor af Anne Birgitte Gotfredsen fra Globe Institute, er der med sikkerhed ikke foretaget aDNA analyser af danske subfossile skarvfund, hvormed der p.t. heller ikke er genetisk dokumentation for, at mellemskarven er oprindeligt hjemmehørende i Danmark.
Internationalt har jeg heller ikke kunnet finde nogle undersøgelser, der belyser oprindelsen af den danske og europæiske bestand af mellemskarv ift. fx asiatiske populationer. Peter Andrew Hosner, Associate Professor der er fuglekurator og kurator på Cryo-samlingerne under Statens Naturhistoriske Museum, KU, hvor der blandt andet opbevares genetisk materiale til biologiske studier, har heller ikke kunnet finde nogen.
Nul dokumentation for at mellemskarven er hjemmehørende i Danmark
Som skitseret ovenfor er der altså p.t. samlet set tilsyneladende hverken kvartærzoologisk eller genetisk dokumentation for, at mellemskarven skulle være en hjemmehørende art i Danmark. Men – det er dog som sådan ikke et bevis for, at mellemskarven ikke kan have været hjemmehørende her. Vi har bare til gode at få det bevist – eller modbevist. Hvad fremtidige studier baseret på aDNA, DNA og/eller mere omfattende knoglestudier vil kunne vise; det ved kun fremtiden.
For at sætte ovennævnte meget faktabaserede discipliner indenfor biologien i perspektiv, er det næste skridt selvfølgelig at dykke ned i det historiske; hvad er der af nedskrevne kilder, malerier og andet, der kan belyse mellemskarvens spredningshistorie – og dermed om den eksempelvis er hjemmehørende eller ikke-hjemmehørende samt måske endda kvalificerer til etiketten invasiv. Sidstnævnte vil rent forvaltningsmæssigt normalt medføre stram regulering eller decideret målrettet bekæmpelse.
Der findes masser af litteratur og undersøgelser fra hele Eurasien, der kan bidrage til at belyse sandsynlighed og evidens for, hvorvidt mellemskarven er indført til Europa og/eller Danmark ad menneskelig vej – eller bare er her helt naturligt.
Hvad det indikerer, når man kæder historikken sammen med resultaterne af eksisterende kvartærzoologiske undersøgelser samtidig med, at man sætter det i et bredt zoogeografisk og naturhistorisk perspektiv, er en meget interessant diskussion, som du meget snart får mit personlige bud på. Den kan du glæde dig til i del to af artiklen “Er mellemskarven hjemmehørende i Danmark?”.
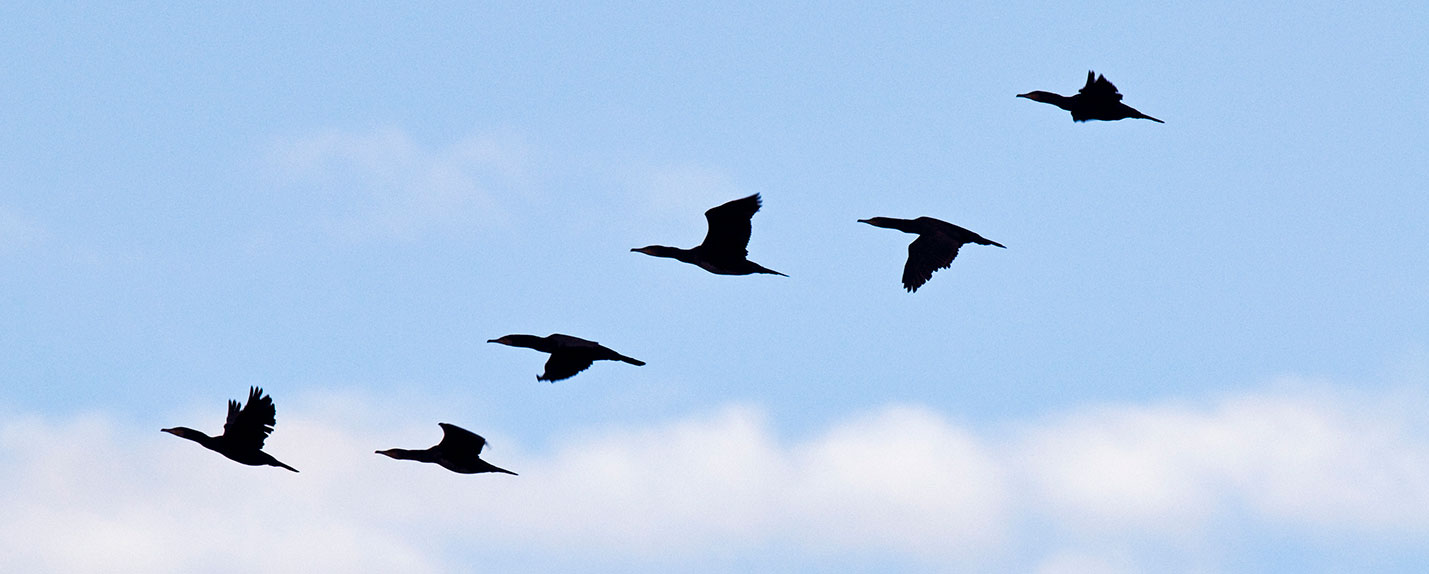
Størstedelen af de danske skarver flyver sydpå om vinteren til fx Mellem- og Sydeuropa eller Nordafrika. En del af dem overvintrer dog også i landet.
Litteraturliste – skarv
Bregnballe, T og Gregersen, J: “Udviklingen i ynglebestanden af Skarv (Phalacrocorax carbo sinensis) i Danmark 1938-1994“, Dansk Om. Foren. Tidsskr. 89 (1995): 119-134, 1995
EIFAAC: “Framework for a European Management Plan for the Great Cormorant”, Food and Agriculture Organization og The United Nations, 2025
Ericson, G, P og Carrasquilla, H: ”Subspecific identity of prehistoric Baltic cormorants Phalacrocorax carbo”, Ardea 85: 1-7. 1997
Food and Agriculture Organization of The United Nations, “European inventory of fish damages caused by cormorant predation” , EIFFAC/OP60 (En), EIFFAC occational paper, ISSN 2221-6650.
Fiskepleje.dk, stalling
Jepsen, N. et Al: ”Betydningen af prædation på danske ferskvandsfiskebestande – en oversigt med fokus på skarv”, Institut for Akvatiske Ressourcer, Danmarks Tekniske Universitet, DTU Aqua-rapport 283-2014
Jepsen, N et Al: ”Cormorant predation on PIT-tagged cod and flounder in an open coastal system”, Fisheries Research 300, 107819, 2026
Ministeriet for Grøn Trepart, Styrelsen for Grøn Arealomlægning og Vandmiljø: ”De invasive arter”.
Verliin, Aa et Al: ”Loss of avian biodiversity on small Baltic islands after the establishment of Great Cormorant breeding colonies: revelations from a 62-year dataset”, Proc. R. Soc. B (2026) 293 (2071): 20253138 , 2026
NB: Dette er blot et udpluk af udvalgte kernereferencer